المناهج الدراسية
تسجيل الدخول

المناهج الدراسية

الأحياء والجيولوجيا

الفصل الأول - الدعامة والحركة في الكائنات الحية

0/35

الفصل الثاني - التنسيق الهرموني في الكائنات الحية

0/29

الفصل الثالث - التكاثر في الكائنات الحية

0/74

الفصل الرابع - المناعة في الكائنات الحية

0/47

الفصل الخامس - البيولوجيا الجزيئية: الحمض النووي DNA والمعلومات الوراثية

0/43

الفصل السادس - البيولوجيا الجزيئية: تخليق البروتين والهندسة الوراثية

0/31

الفصل السابع - الجيولوجيا وعلوم الأرض والبيئة المدمجة

0/60

دروس إضافية

0/56
نص الدرس

الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح

الأحياء والجيولوجيا

الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح

مقدمة

مقدمة

  • يصف تركيب النيوكليوتيدة وهيكل سكر-فوسفات وقواعد تزاوج القواعد النيتروجينية.
  • يوضح دور فرانكلين وواطسون وكريك في التوصل إلى نموذج اللولب المزدوج.
  • يشرح خطوات تضاعف DNA وإنزيماته والشريطين القائد والمتأخر.
  • يفسر كيف تُصلح الخلية عيوب DNA وسبب أهمية اللولب المزدوج للثبات الوراثي.

🌳 شجرة المفاهيم

الدرس الثانيتركيب DNA وتضاعفه وإنزيمات الإصلاح
├── أولًاالأدلة السابقة لوضع نموذج DNA

│ └── المعلومات التي بُني عليها النموذج

├── ثانيًا←تركيب النيوكليوتيدة

│ ├── المكونات الثلاثة

│ ├── القواعد النيتروجينية في DNA

│ └── مقارنة بين نوعي القواعد
├── ثالثًاالشريط الواحد وهيكل سكر-فوسفات
├── رابعًاقواعد تكافؤ القواعد النيتروجينية

│ └── تطبيق حسابي على قاعدة التكافؤ

├── خامسًا←صور حيود الأشعة السينية (فرانكلين)

│ └── ما أظهرته صور فرانكلين (نُشرت عام 1952)

├── سادسًا←نموذج واطسون وكريك (اللولب المزدوج)

│ ├── وصف النموذج

│ ├── الروابط بين القواعد

│ └── ثبات عرض السلم

├── سابعًا←اتجاه الشريطين والتفاف اللولب

│ ├── الشريطان المتوازيان عكسيًا

│ ├── اللولب

│ └── قوانين حسابية على اللولب

├── ثامنًا←فكرة تضاعف DNA وأهميته
│ └── مبدأ التكامل
├── تاسعًاخطوات تضاعف DNA
│ ├── الخطوة الأولىانفكاك اللولب
│ ├── الخطوة الثانيةفصل الشريطين
│ ├── الخطوة الثالثةبناء الأشرطة الجديدة

│ └── اتجاه عمل إنزيم البلمرة

├── عاشرًا←الشريط القائد والشريط المتأخر

│ ├── الشريط القالب ‎3′ → 5′‎

│ ├── الشريط القالب ‎5′ → 3′‎

│ └── مقارنة بين الشريطين الجديدين

├── حادي عشر←البرايميز والبادئ ودور الإنزيمات

│ ├── حاجة البلمرة إلى بادئ

│ ├── إزالة البوادئ

│ ├── ملخص إنزيمات التضاعف

│ └── نتيجة التضاعف

وجه المقارنةالفكرة الأساسيةكلمات مفتاحية
├── ثاني عشرنقاط بدء التضاعف في الخلايا المختلفةنقاطالتضاعفالخلاياالمختلفة
├── ثالث عشرإصلاح عيوب DNAإصلاحعيوب
•│ ├── لماذا يتلف DNA؟لماذايتلف

│ ├── كفاءة الإصلاح

│ └── خطوات الإصلاح

└── رابع عشر←شروط الإصلاح وأهمية اللولب المزدوج

├── الاعتماد على نسختين

  • ├── متى يتعذر الإصلاح؟

├── حالة فيروسات RNA

├── النتيجة

└── ملخص الإصلاح

الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 1 / 19
أولًا: الأدلة السابقة لوضع نموذج DNA

أولًا: الأدلة السابقة لوضع نموذج DNA

  • منذ أوائل الخمسينيات تجمّعت أدلة قوية على أن DNA يحمل المعلومات الوراثية للخلية.
  • انشغل باحثون كثيرون بمحاولة معرفة تركيب جزيء DNA ووضع نموذج له.
  • يجب أن يراعي أي نموذج المعلومات المنبثقة عن التجارب، وهي التي نعرضها في النقاط التالية.
  • DNA يتكون من نيوكليوتيدات ترتبط ببعضها في شريط.
  • أحد الشريطين يتجه عكس الآخر وهيكل سكر-فوسفات إلى الخارج.
  • عدد القواعد A يساوي عدد T، وعدد G يساوي عدد C.
  • صور حيود الأشعة السينية أظهرت أن الجزيء حلزوني ويتكون من أكثر من شريط.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 2 / 19
ثانيًا: تركيب النيوكليوتيدة

ثانيًا: تركيب النيوكليوتيدة

المكونات الثلاثة

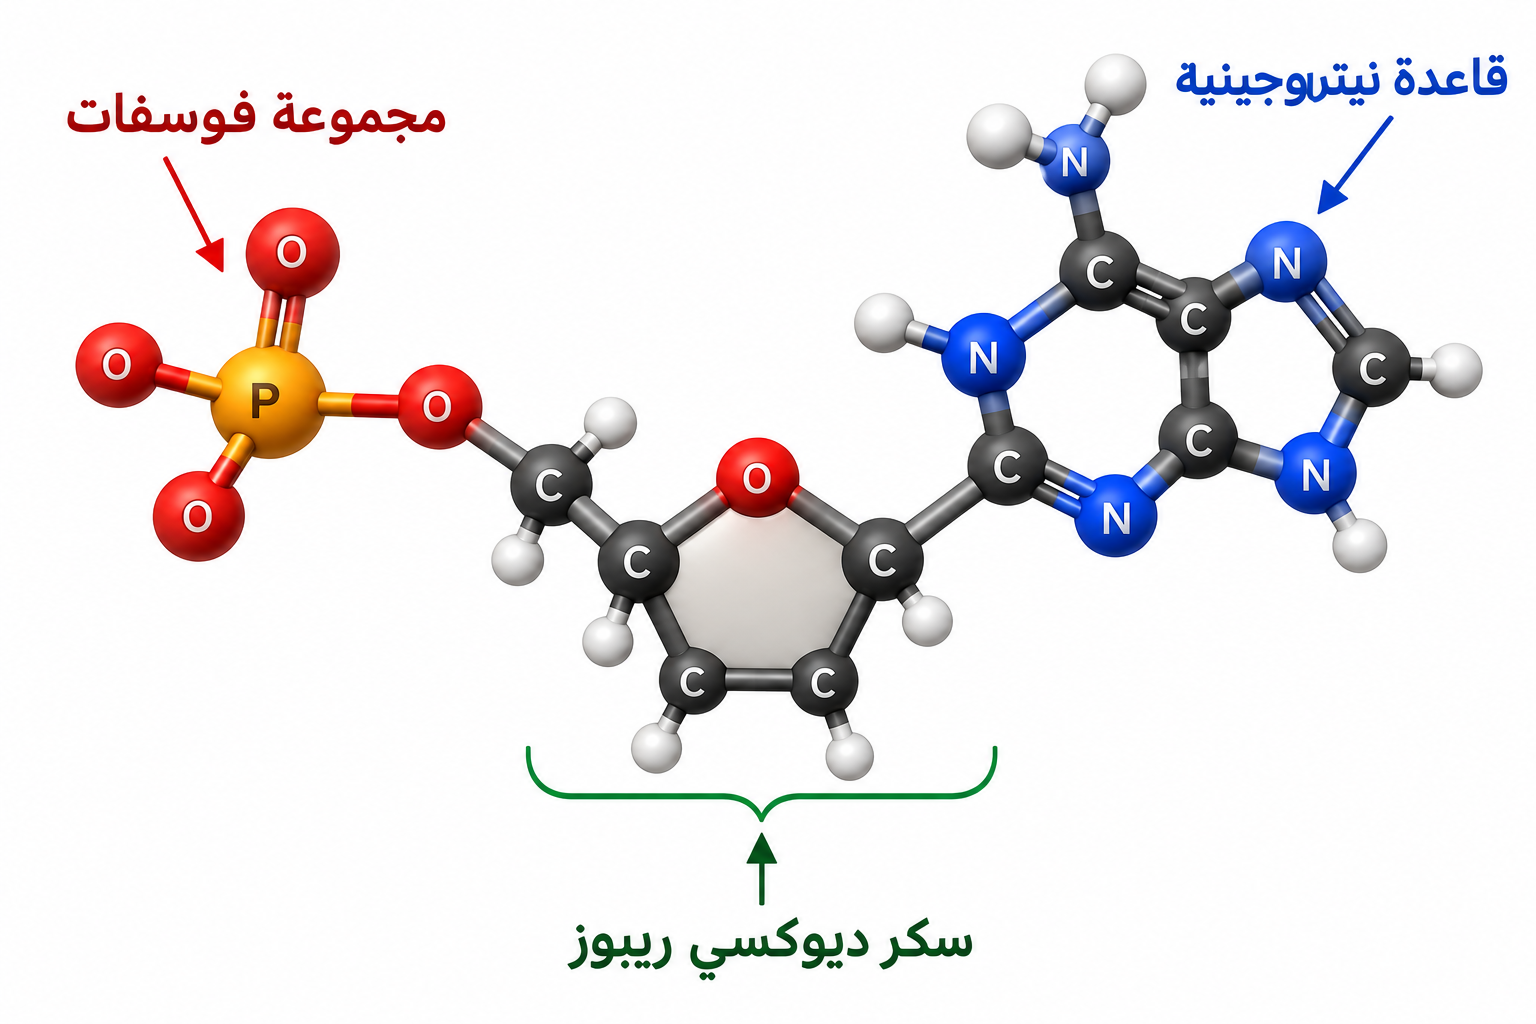
شكل 1: تركيب نيوكليوتيدة DNA يوضح الشكل تركيب النيوكليوتيدة في DNA، وتتكون من سكر خماسي هو الديوكسي ريبوز، ومجموعة فوسفات، وقاعدة نيتروجينية. وتنقسم القواعد إلى البيريميدينات، وهي الثايمين والسيتوزين ذات الحلقة الواحدة، والبيورينات، وهي الأدينين والجوانين ذات الحلقتين.
شكل 1←تركيب نيوكليوتيدة DNA يوضح الشكل تركيب النيوكليوتيدة في DNA، وتتكون من سكر خماسي هو الديوكسي ريبوز، ومجموعة فوسفات، وقاعدة نيتروجينية. وتنقسم القواعد إلى البيريميدينات، وهي الثايمين والسيتوزين ذات الحلقة الواحدة، والبيورينات، وهي الأدينين والجوانين ذات الحلقتين.: ثانيًا: تركيب النيوكليوتيدة
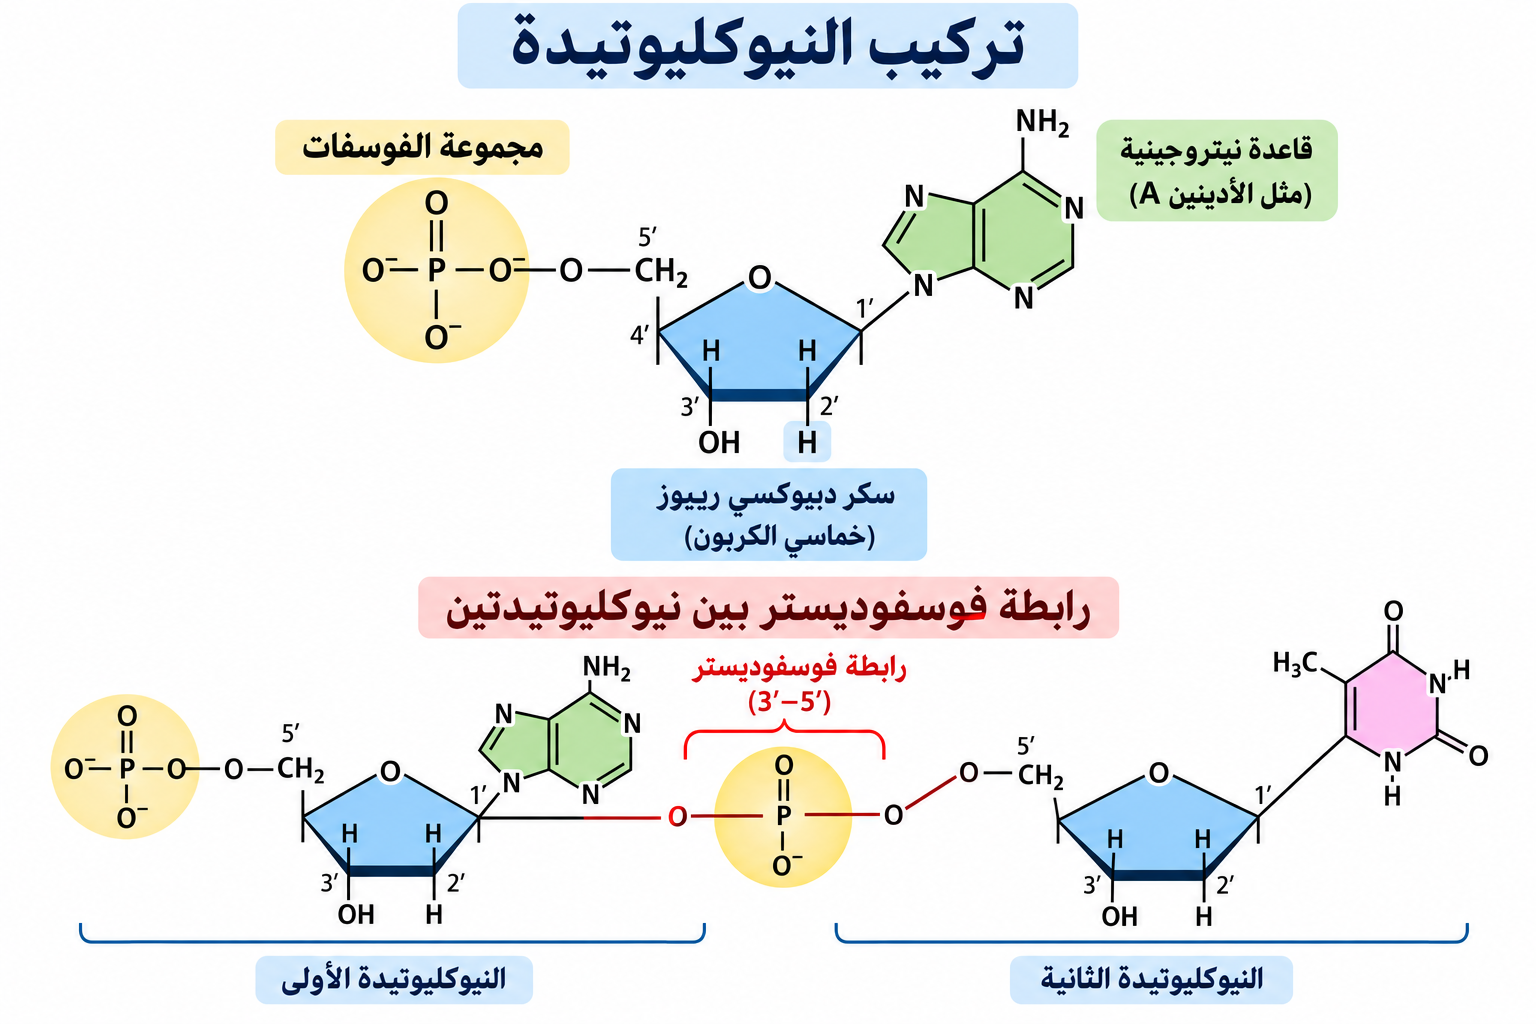
شكل 2: تركيب النيوكليوتيدة يبيّن الشكل ترتيب مكونات النيوكليوتيدة، فترتبط مجموعة الفوسفات بالكربون 5 في السكر، وترتبط القاعدة النيتروجينية بالكربون 1. وتتكرر هذه الوحدة لتكوين شريط DNA، لذلك يُعد فهم مواضع الارتباط خطوة أساسية لفهم بناء الجزيء كله.
سكر خماسيهو الديوكسي ريبوز (C₅H₁₀O₄) في نيوكليوتيدات DNA.
مجموعة فوسفاتترتبط برابطة تساهمية بذرة الكربون رقم 5 في السكر.
قاعدة نيتروجينيةترتبط برابطة تساهمية بذرة الكربون رقم 1 في السكر.
القواعد النيتروجينية في DNA
البيريميديناتقواعد ذات حلقة واحدة، وهي الثايمين (T) والسيتوزين (C).
البيوريناتقواعد ذات حلقتين، وهي الأدينين (A) والجوانين (G).
وجه المقارنة البيورينات البيريميدينات
عدد الحلقات حلقتان حلقة واحدة
قواعد DNA أدينين وجوانين ثايمين وسيتوزين
الحجم أكبر أصغر
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 3 / 19
ثالثًا: الشريط الواحد وهيكل سكر-فوسفات

ثالثًا: الشريط الواحد وهيكل سكر-فوسفات

الرابطة الفوسفوديستر
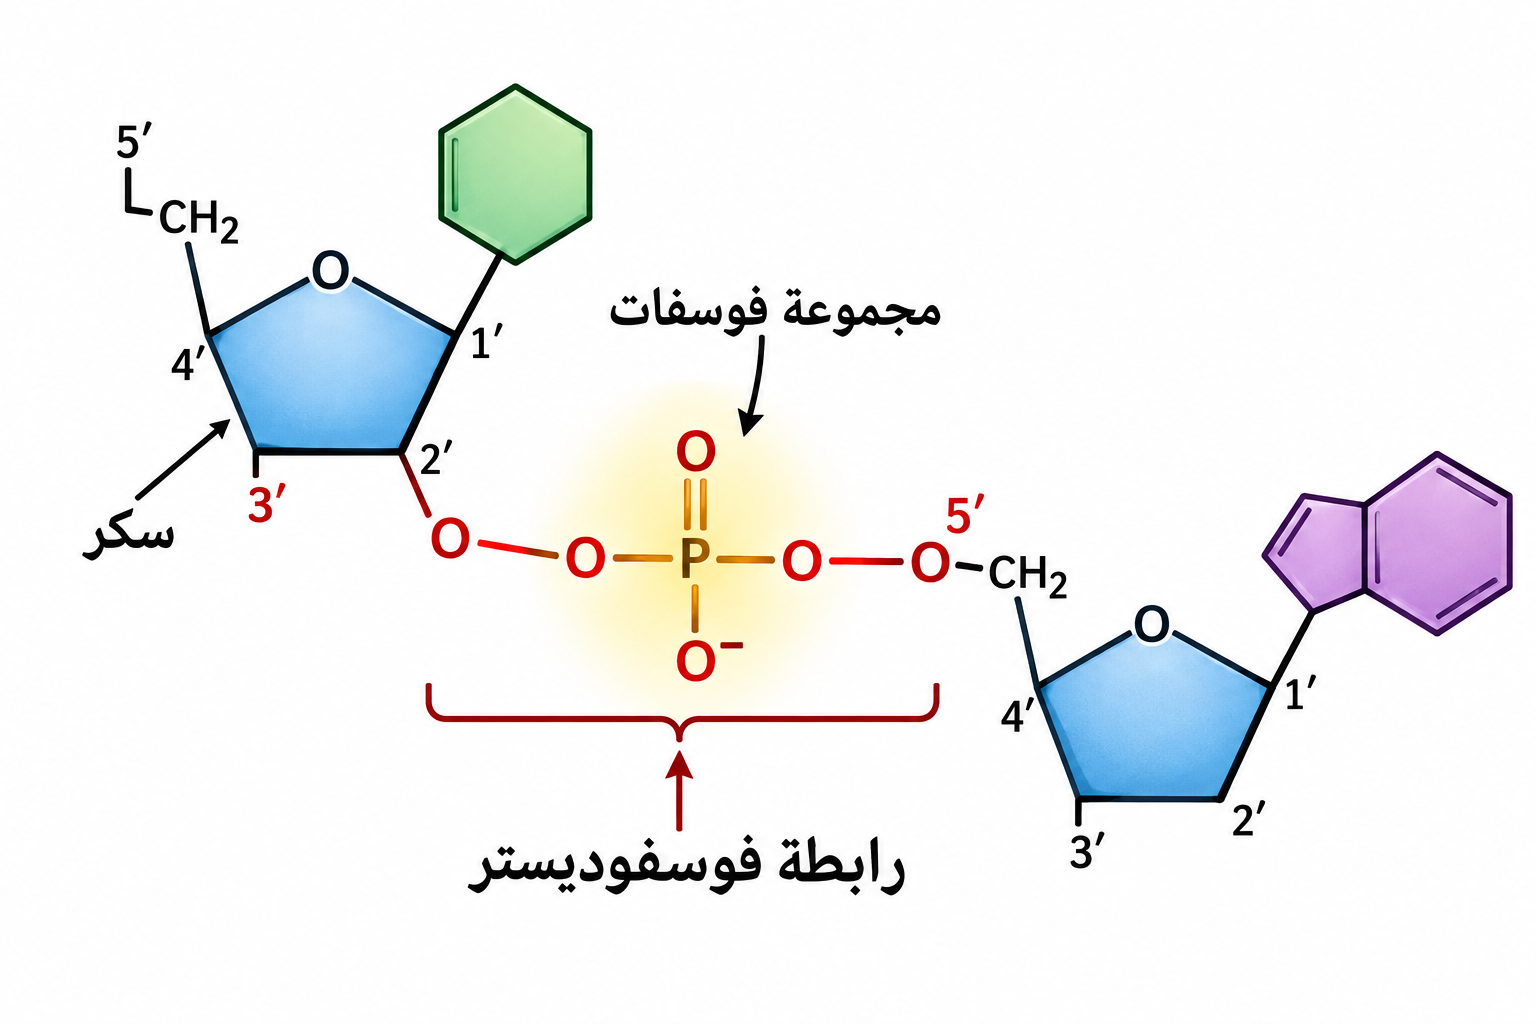
  • ترتبط نيوكليوتيدات الشريط الواحد بأن تتصل مجموعة الفوسفات المرتبطة بالكربون 5 في سكر نيوكليوتيدة بذرة الكربون 3 في سكر النيوكليوتيدة التالية.
  • الرابطة بينهما تساهمية.
  • يُسمّى الشريط الذي يتبادل فيه السكر والفوسفات هيكل سكر-فوسفات.
  • هذا الهيكل غير متماثل:
  • عند أحد الطرفين توجد مجموعة فوسفات طليقة متصلة بالكربون 5′.
  • عند الطرف الآخر توجد مجموعة هيدروكسيل (OH) طليقة متصلة بالكربون 3′.
  • أما القواعد النيتروجينية (البيورينات والبيريميدينات) فتبرز على جانب واحد من هيكل سكر-فوسفات.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 4 / 19
رابعًا: قواعد تكافؤ القواعد النيتروجينية

رابعًا: قواعد تكافؤ القواعد النيتروجينية

  • في كل جزيئات DNA يكون عدد النيوكليوتيدات الحاملة للأدينين مساويًا لعدد الحاملة للثايمين.
  • ويكون عدد الحاملة للجوانين مساويًا لعدد الحاملة للسيتوزين.
  • بصيغة رمزية:
  • A = T ، G = C
زوج الأدينين والثايمين
  1. ينتج عن ذلك أن مجموع البيورينات يساوي مجموع البيريميدينات:
  2. A + G = T + C

تطبيق حسابي على قاعدة التكافؤ

✍️ أمثلة محلولة

  • مثال 1 في جزيء DNA مزدوج كانت نسبة الأدينين 30%، فما نسبة كل قاعدة أخرى؟
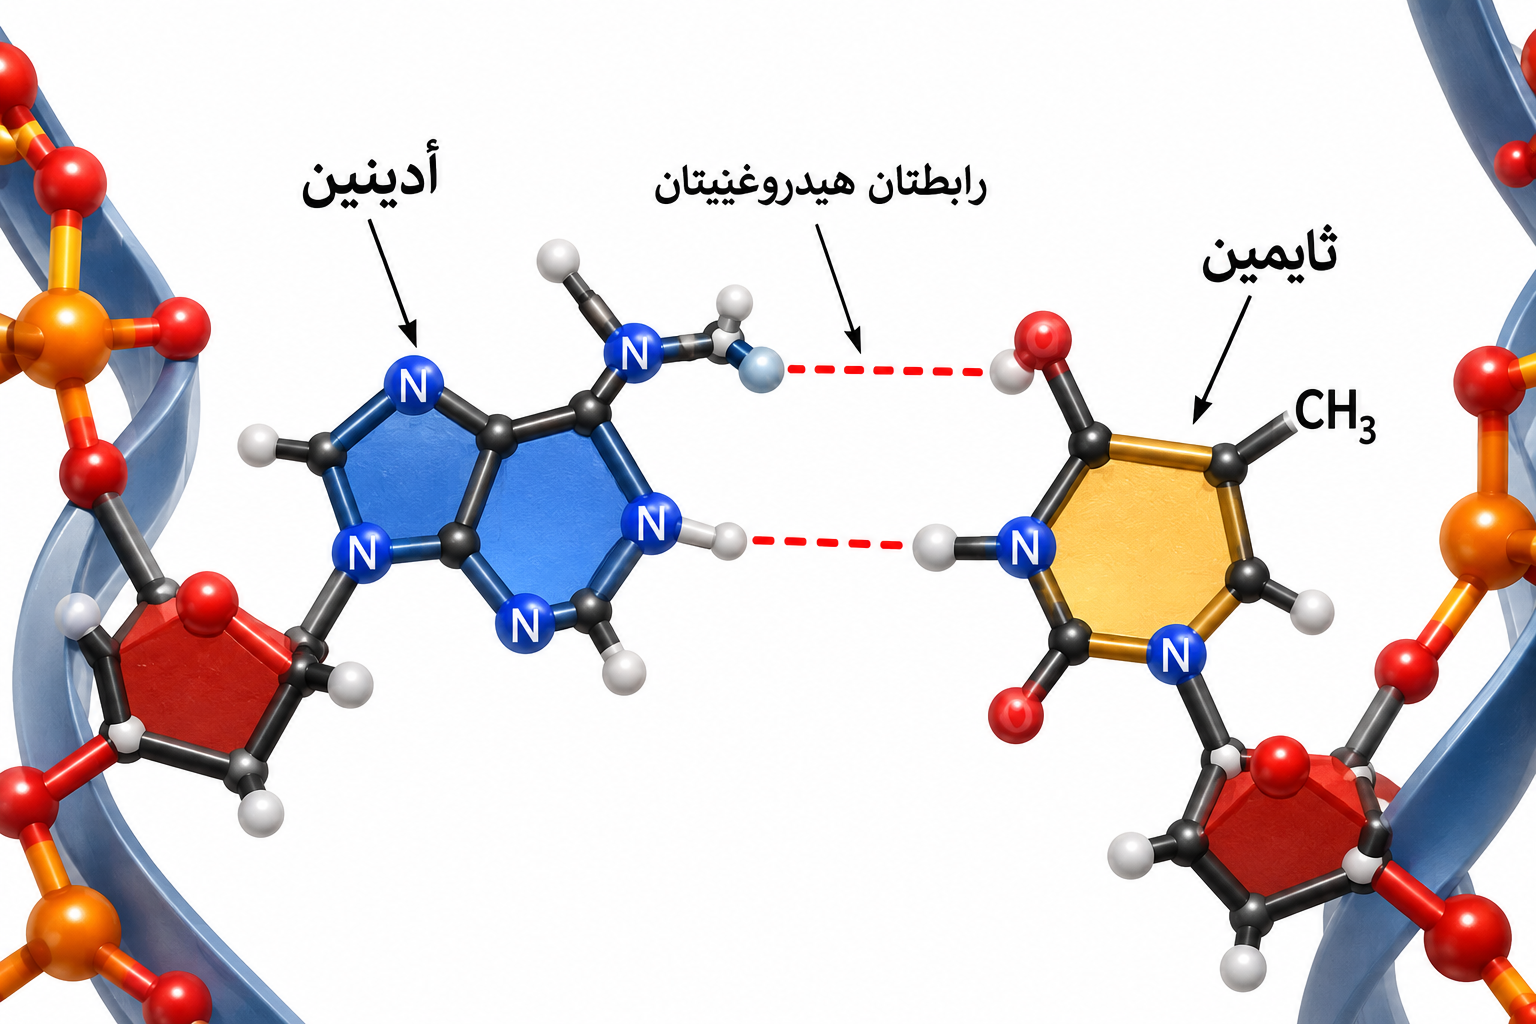
  • شكل 4 زوج الأدينين والثايمين
  • يوضح الشكل زوج الأدينين مع الثايمين في DNA، ويقوم قانون التكافؤ على أن عدد الأدينين يساوي عدد الثايمين، وأن مجموع البيورينات يساوي مجموع البيريميدينات.
  • فإذا كانت نسبة الأدينين 30% كانت نسبة الثايمين 30% أيضًا، وتبقى 40% للجوانين والسيتوزين بالتساوي بنسبة 20% لكل منهما.
  • الحل:
  • نسبة الثايمين = نسبة الأدينين = 30%.
  • مجموع A + T = 60%، فيبقى لـ G + C نسبة

    100% – 60% = 40%

    .
  • بما أن G = C، فكل منهما =

    40% ÷ 2 = 20%

    .
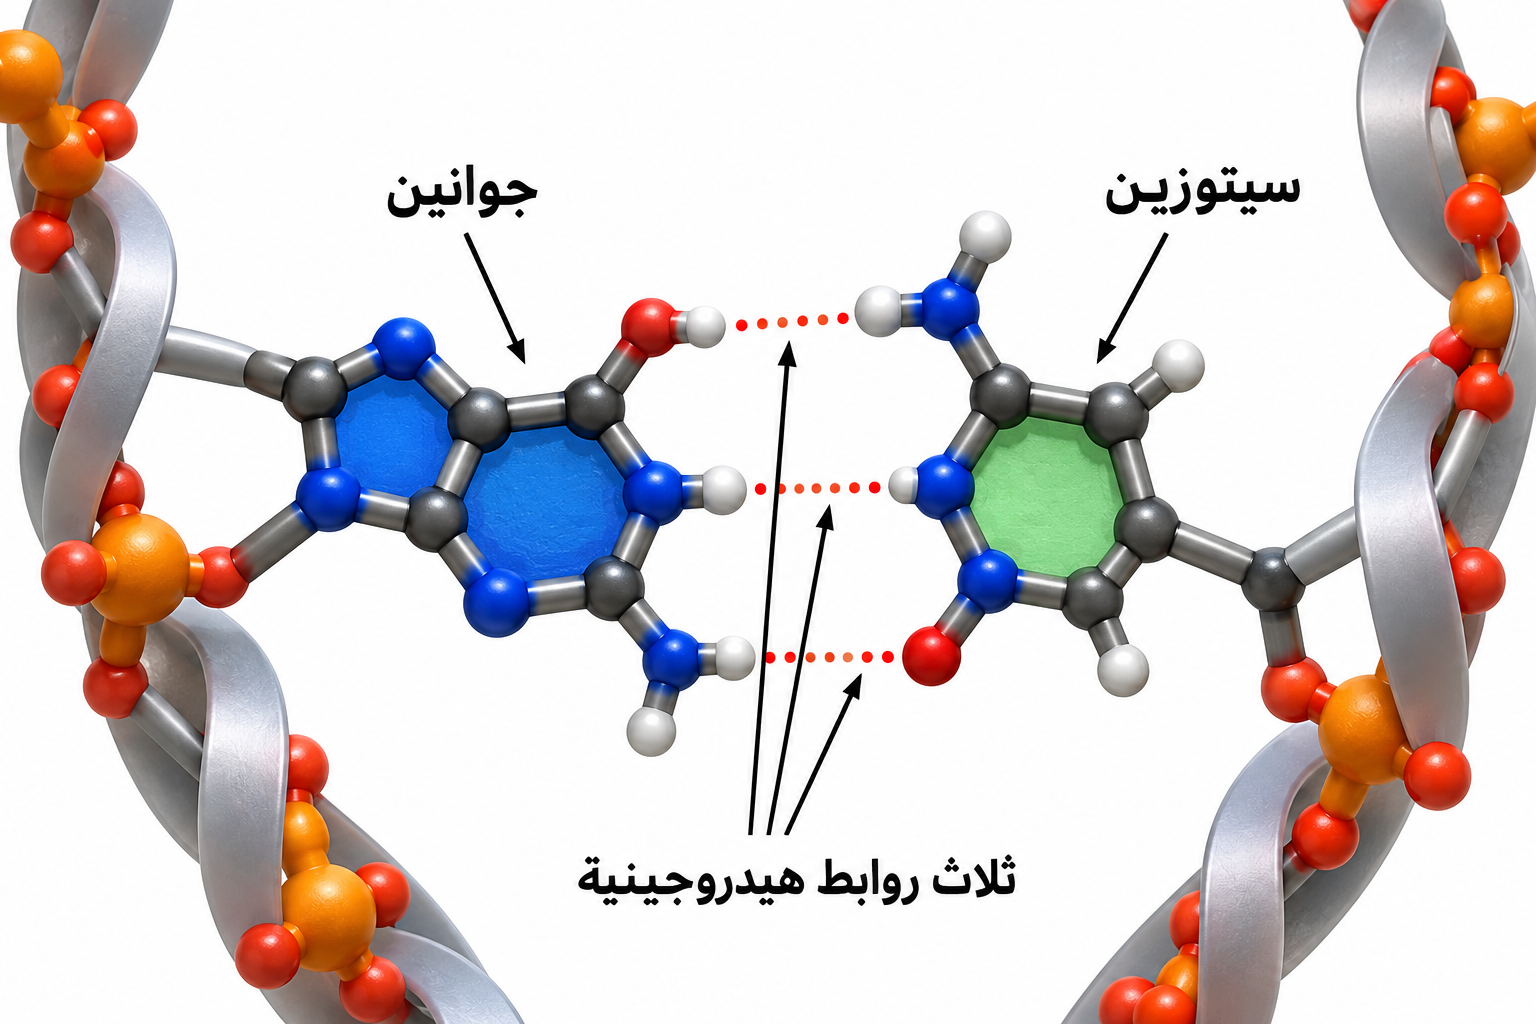
شكل 5: زوج الجوانين والسيتوزين يبين الشكل زوج الجوانين مع السيتوزين، وهو زوج يرتبط بثلاث روابط هيدروجينية، أي أقوى من زوج الأدينين والثايمين الذي يرتبط بروابط ثنائية. وتتيح هذه القاعدة التكافؤ بين عدد الجوانين والسيتوزين في الجزيء، فإذا عُلم عدد أحدهما عُرف عدد الآخر.
شكل 5←زوج الجوانين والسيتوزين يبين الشكل زوج الجوانين مع السيتوزين، وهو زوج يرتبط بثلاث روابط هيدروجينية، أي أقوى من زوج الأدينين والثايمين الذي يرتبط بروابط ثنائية. وتتيح هذه القاعدة التكافؤ بين عدد الجوانين والسيتوزين في الجزيء، فإذا عُلم عدد أحدهما عُرف عدد الآخر.: رابعًا: قواعد تكافؤ القواعد النيتروجينية
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 5 / 19
خامسًا: صور حيود الأشعة السينية (فرانكلين)

خامسًا: صور حيود الأشعة السينية (فرانكلين)

  • جاء الدليل المباشر على الشكل الفراغي لـ DNA من دراسات روزاليند فرانكلين.
  • استخدمت تقنية حيود الأشعة السينية (X) للحصول على صور لبلورات من DNA عالي النقاوة.
  • في هذه التقنية تُمرَّر الأشعة خلال بلورات جزيئات ذات تركيب منتظم، فتتشتت وتعطي طراز نقط يُحلَّل لمعرفة شكل الجزيء.
  • جزيء DNA ملتف على هيئة حلزون أو لولب (Helix).
  • القواعد النيتروجينية متعامدة على طول الخيط.
  • هيكل سكر-فوسفات في الجهة الخارجية من اللولب، والقواعد النيتروجينية في الداخل.
  • قطر اللولب يدل على أنه يتكون من أكثر من شريط من DNA.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 6 / 19
سادسًا: نموذج واطسون وكريك (اللولب المزدوج)

سادسًا: نموذج واطسون وكريك (اللولب المزدوج)

  • بعد نشر صور فرانكلين بدأ سباق بين العلماء لوضع المعلومات المتاحة في نموذج.
  • أول من وضع نموذجًا مقبولًا هما واطسون وكريك (1953).

وصف النموذج

  1. يتكون من شريطين يرتبطان معًا كـ السلم الخشبي.
  2. يمثلان جانبي السلم.
  3. تمثل درجات السلم.
  4. تتكوّن كل درجة من أدينين مع ثايمين أو جوانين مع سيتوزين.
  5. قد توجد أي من القواعد الأربع على أي من الشريطين في الدرجة.

الروابط بين القواعد

  1. ترتبط أزواج القواعد في كل درجة بـ روابط هيدروجينية:
  2. بين A و T توجد رابطتان هيدروجينيتان (A = T).
  3. بين G و C توجد ثلاث روابط هيدروجينية (G ≡ C).

ثبات عرض السلم

  • كل زوج من القواعد يضم قاعدة ذات حلقة واحدة مع قاعدة ذات حلقتين.
  • لذلك يكون عرض درجات السلم متساويًا.
  • ويبقى الشريطان على المسافة نفسها من بعضهما على امتداد الجزيء.
نموذج واتسون وكريك
نموذج واتسون وكريك
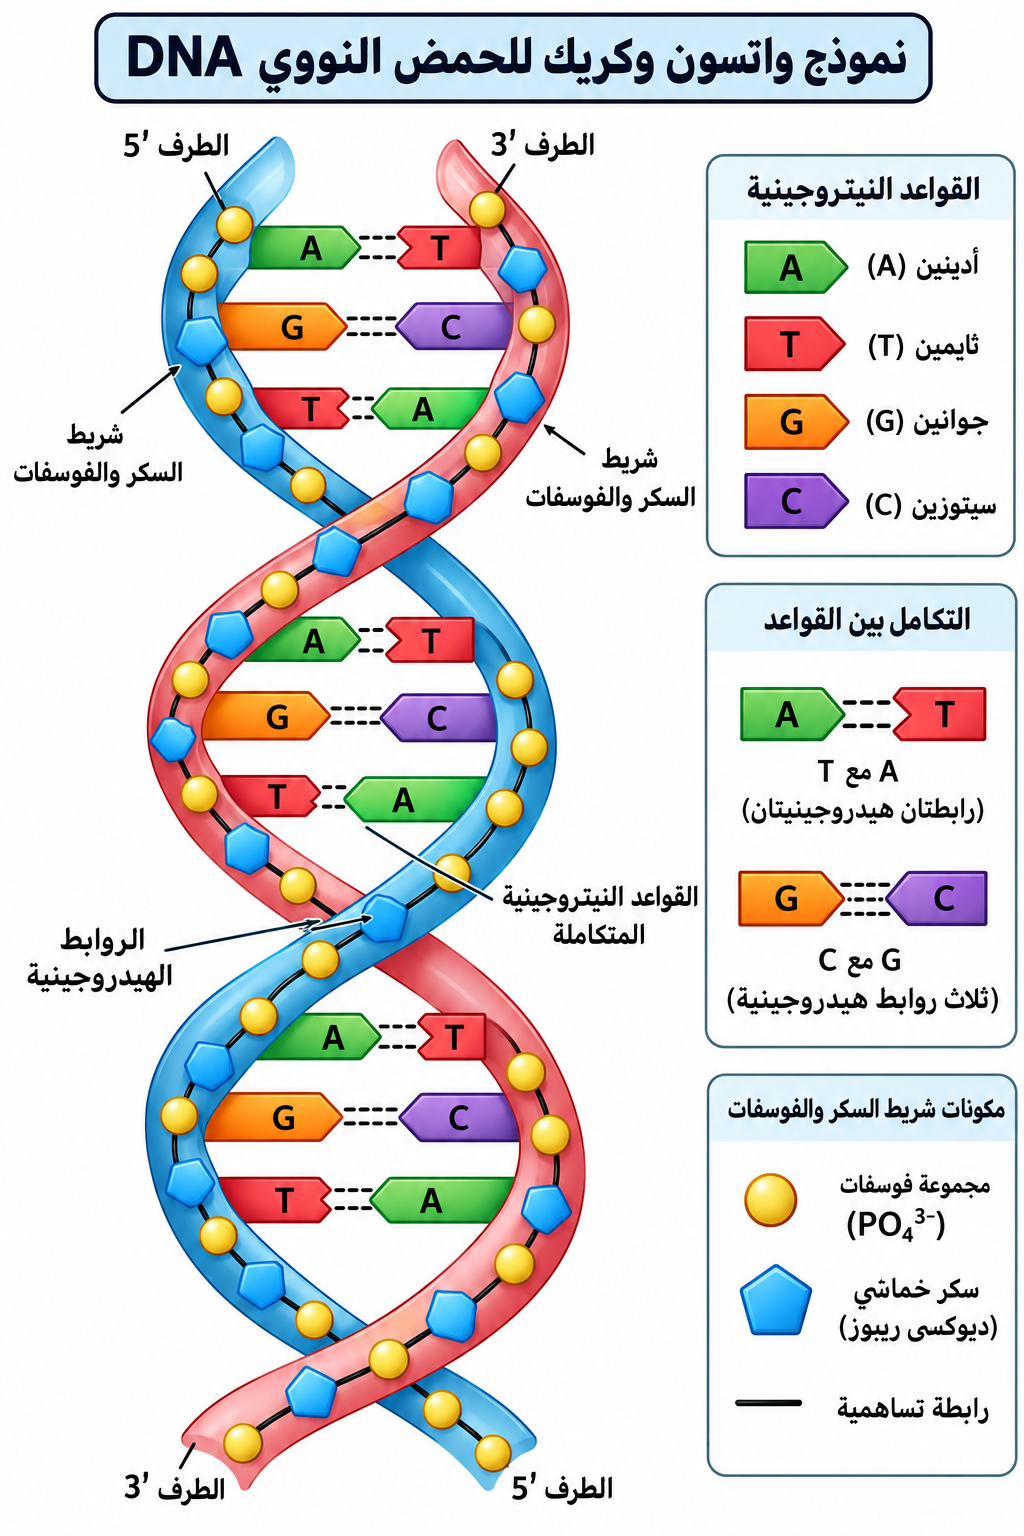
  • شكل 6 نموذج واتسون وكريك
  • يوضح الشكل نموذج واتسون وكريك لجزيء DNA على هيئة لولب مزدوج يشبه السلم، فهيكلا السكر والفوسفات يمثلان جانبي السلم، والقواعد النيتروجينية المتزاوجة تمثل درجاته.
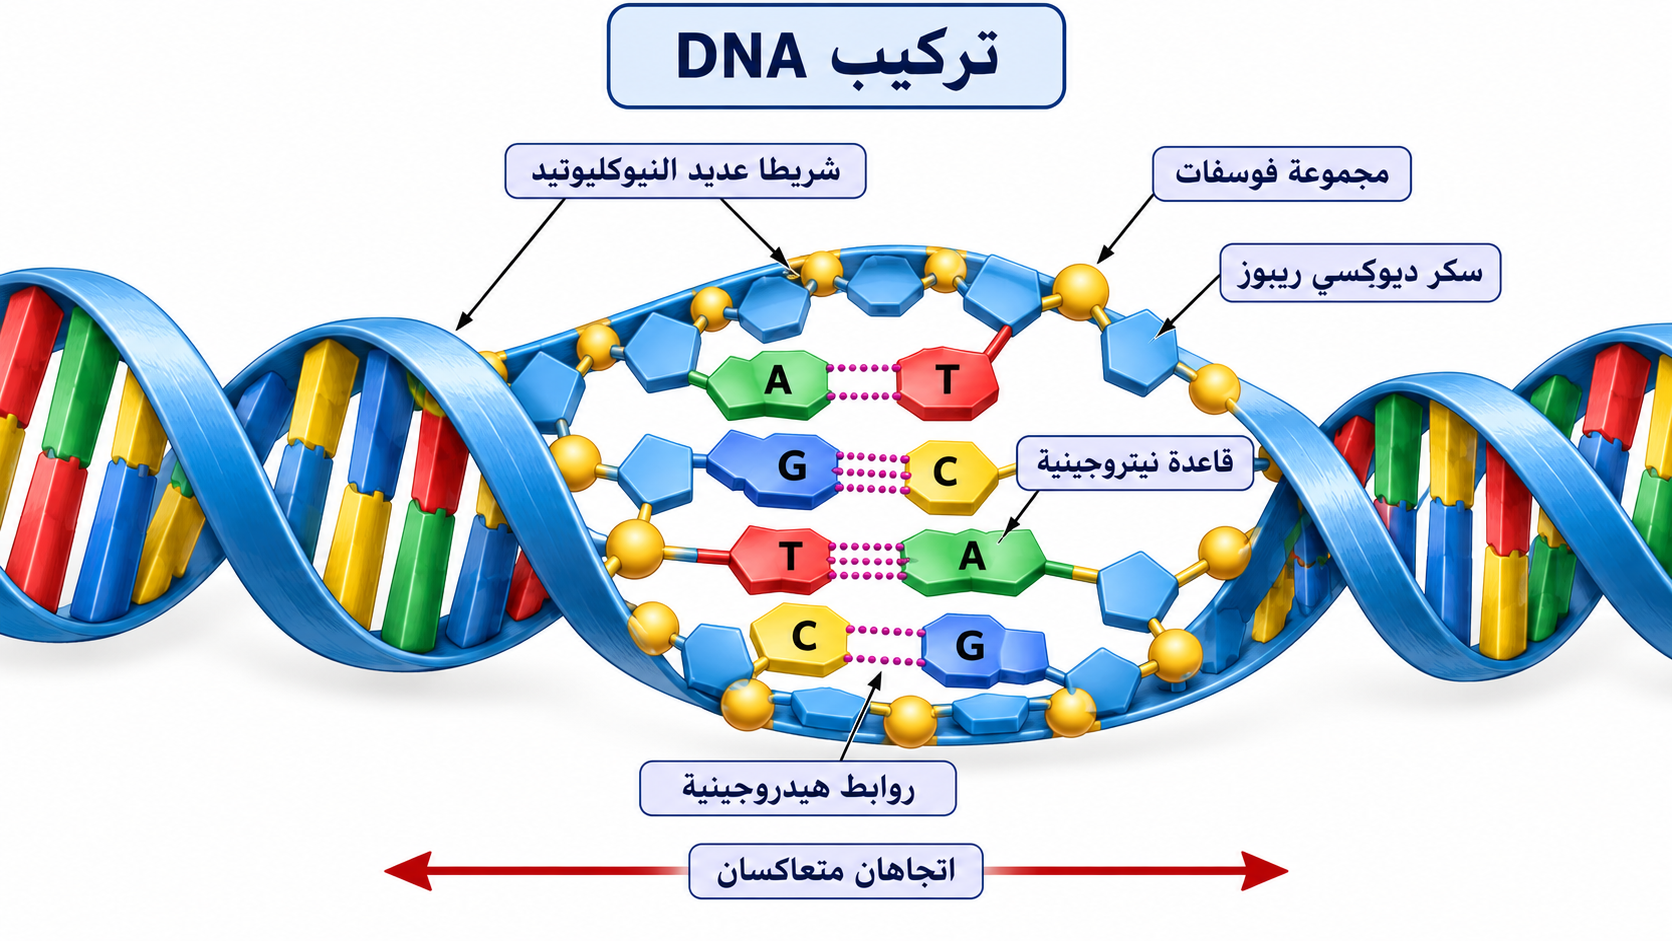
شكل 7: تركيب DNA يبين الشكل تركيب DNA، حيث يبقى الشريطان على مسافة ثابتة من بعضهما طوال الجزيء، لأن كل زوج قاعدي يجمع قاعدة ذات حلقة واحدة مع قاعدة ذات حلقتين، فيتساوى عرض درجات السلم. وهذه الخاصية تفسر انتظام شكل اللولب المزدوج على امتداده.
شكل 7←تركيب DNA يبين الشكل تركيب DNA، حيث يبقى الشريطان على مسافة ثابتة من بعضهما طوال الجزيء، لأن كل زوج قاعدي يجمع قاعدة ذات حلقة واحدة مع قاعدة ذات حلقتين، فيتساوى عرض درجات السلم. وهذه الخاصية تفسر انتظام شكل اللولب المزدوج على امتداده.: سادسًا: نموذج واطسون وكريك (اللولب المزدوج)
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 7 / 19
سابعًا: اتجاه الشريطين والتفاف اللولب

سابعًا: اتجاه الشريطين والتفاف اللولب

الشريطان المتوازيان عكسيًا

  • لكي تتكوّن الروابط الهيدروجينية بين زوجي القواعد بشكل سليم، رأى واطسون وكريك أن أحد الشريطين يكون في وضع معاكس للآخر.
  • أي أن مجموعة الفوسفات الطرفية المتصلة بالكربون 5′ في الشريطين تقع عند الطرفين المعاكسين.
  • يتجه أحد الشريطين 5′ → 3′ والآخر 3′ → 5′.
  • يُسمّى هذا التعاكس التوازي العكسي (Antiparallel).
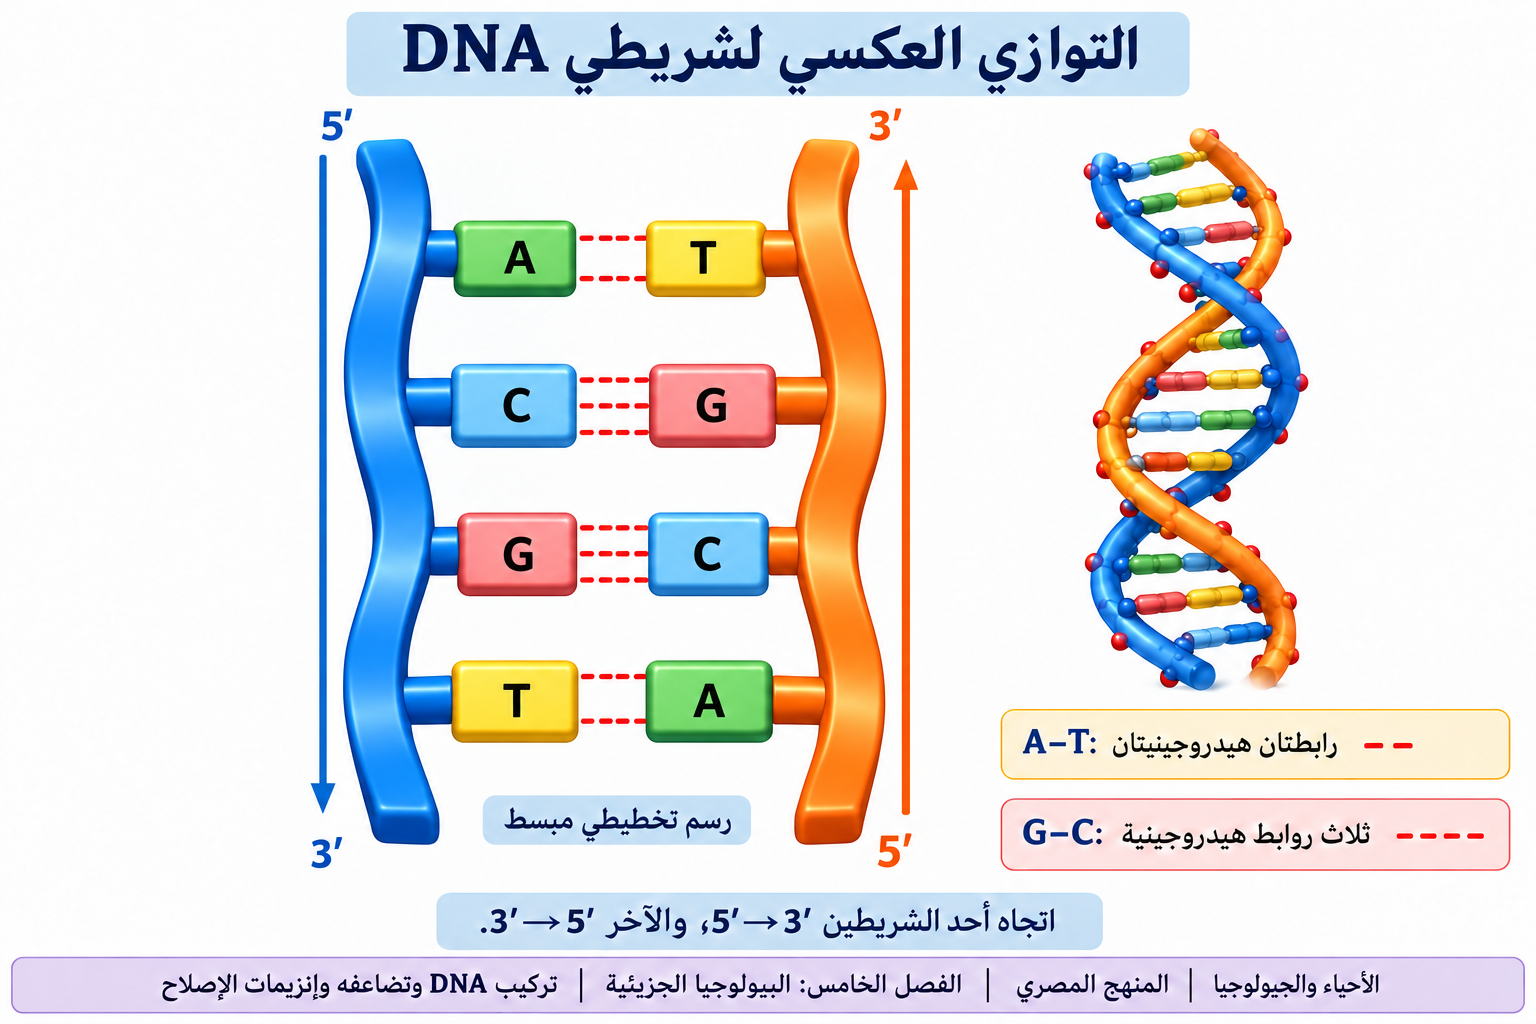
    شكل 8: التوازي العكسي لشريطي DNA

    يوضح الشكل التوازي العكسي لشريطي DNA، فيتجه أحد الشريطين من 5′ إلى 3′ بينما يتجه الآخر من 3′ إلى 5′. وهذا الترتيب ضروري لتكوين الروابط الهيدروجينية بين أزواج القواعد بشكل سليم، ويجعل مجموعة الفوسفات الطرفية في كل شريط عند طرف معاكس للآخر.

اللولب

  • سلم DNA ككل يلتف أو يُجدل.
  • يوجد عشر نيوكليوتيدات في كل لفة على الشريط الواحد.
  • بما أن اللولب يتكوّن من شريطين يلتفان حول بعضهما، يُسمّى الجزيء اللولب المزدوج (Double Helix).

قوانين حسابية على اللولب

  • عدد اللفات = عدد النيوكليوتيدات في الشريط الواحد ÷ 10.
  • عدد اللفات = عدد النيوكليوتيدات الكلي (في الشريطين) ÷ 20.
  • عدد مجموعات الفوسفات الطليقة في DNA خطي مزدوج = 2 (واحدة عند طرف 5′ لكل شريط).

    مثال 1: قطعة DNA مزدوجة تحتوي 400 نيوكليوتيدة في الشريطين معًا، فكم لفة؟

  • الحل:
  • عدد اللفات = 400 ÷ 20.
  • عدد اللفات = 20 لفة.
التوازي العكسي لشريطي DNA
  • شكل 8 التوازي العكسي لشريطي DNA
  • يوضح الشكل التوازي العكسي لشريطي DNA، فيتجه أحد الشريطين من 5′ إلى 3′ بينما يتجه الآخر من 3′ إلى 5′.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 8 / 19
ثامنًا: فكرة تضاعف DNA وأهميته

ثامنًا: فكرة تضاعف DNA وأهميته

  • قبل أن تدخل الخلية في الانقسام تتضاعف كمية DNA فيها.
  • الهدف أن تستقبل كل خلية جديدة نسخة طبق الأصل من المعلومات الوراثية للخلية الأم.
  • أشار واطسون وكريك إلى أن تركيب الشريط المزدوج ذي القواعد المتزاوجة يوفّر وسيلة لمضاعفة المعلومات بدقة.

مبدأ التكامل

  • الشريطان يحتويان على قواعد متكاملة، فتتابع النيوكليوتيدات في كل شريط يحدد تتابع الشريط المقابل.
  • مثال إذا كان تتابع جزء من شريط ‎3′ … A–A–T–C–C … 5′‎ فإن الشريط المكمل له يكون ‎5′ … T–T–A–G–G … 3′‎.
  • عند فصل الشريطين يعمل كل منهما قالبًا لبناء شريط جديد متكامل معه.
  • أجرى العلماء تجارب كثيرة للتأكد من هذه الفكرة.
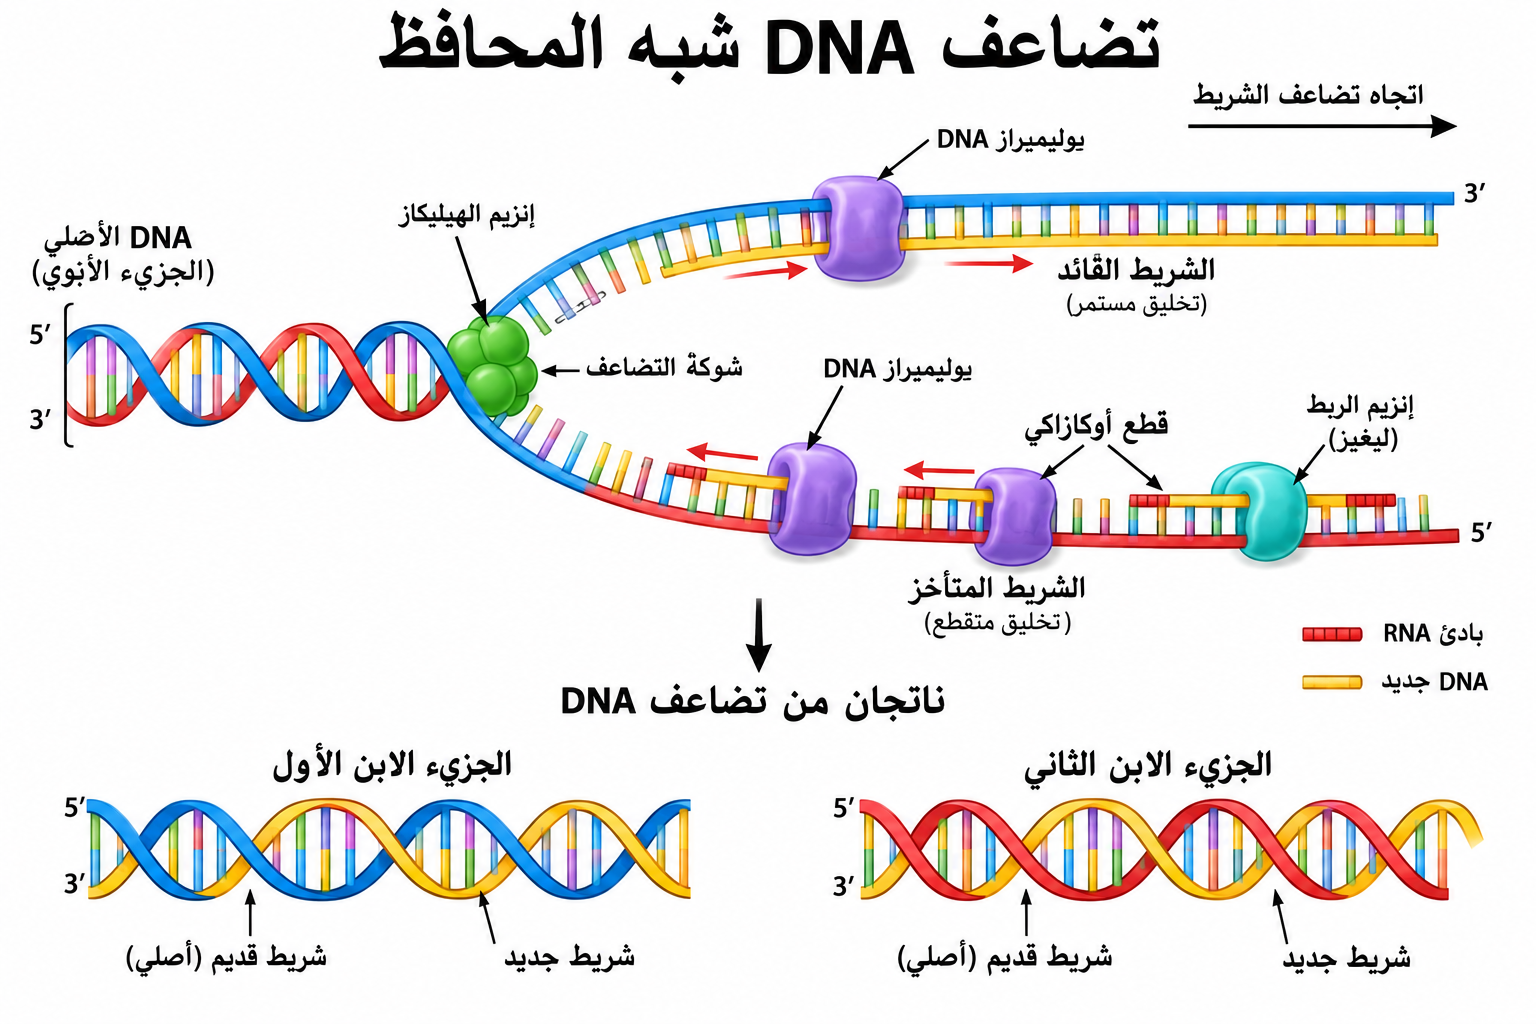
تضاعف DNA شبه المحافظ
  • شكل 9 تضاعف DNA شبه المحافظ
  • يعرض الشكل فكرة تضاعف DNA شبه المحافظ، إذ ينفصل الشريطان ويبني كل منهما شريطًا جديدًا مكملًا له، فيحتوي كل جزيء ابنة على شريط قديم وآخر جديد.
  • لذلك يُسمّى التضاعف شبه محافظ، وتتطابق المعلومات الوراثية في الخليتين الجديدتين.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 9 / 19
تاسعًا: خطوات تضاعف DNA

تاسعًا: خطوات تضاعف DNA

  • يحتاج تضاعف DNA إلى تكامل عدد من الإنزيمات والبروتينات.
  • ينفك التفاف اللولب المزدوج ليتمكن الإنزيم من التحرك على امتداده.
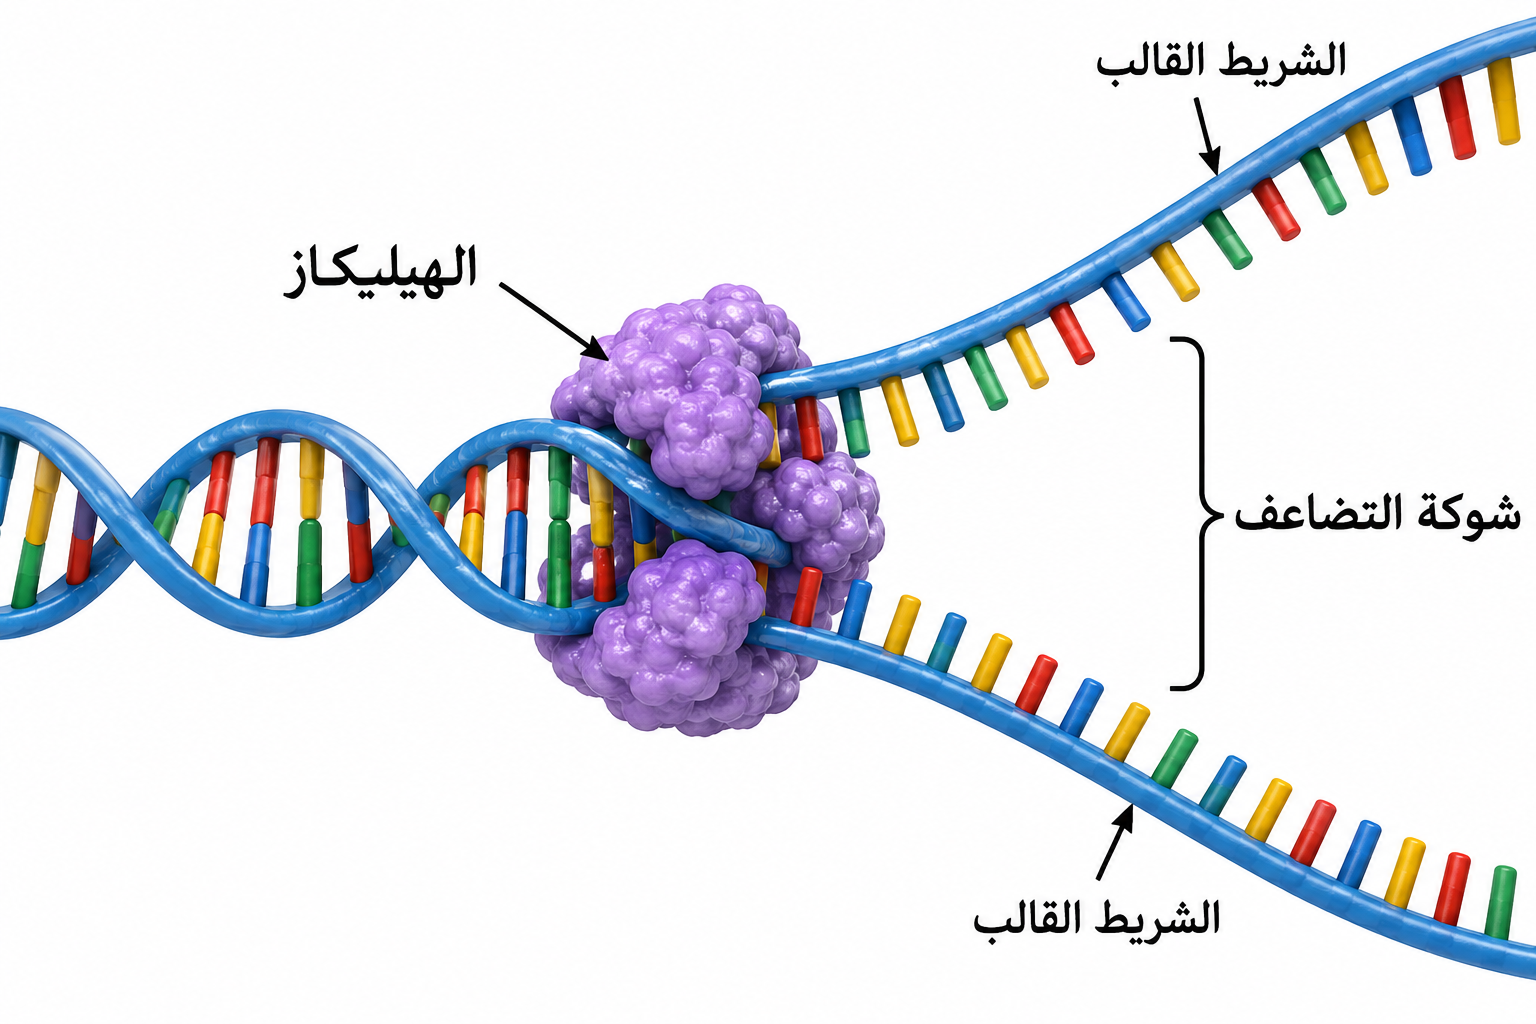
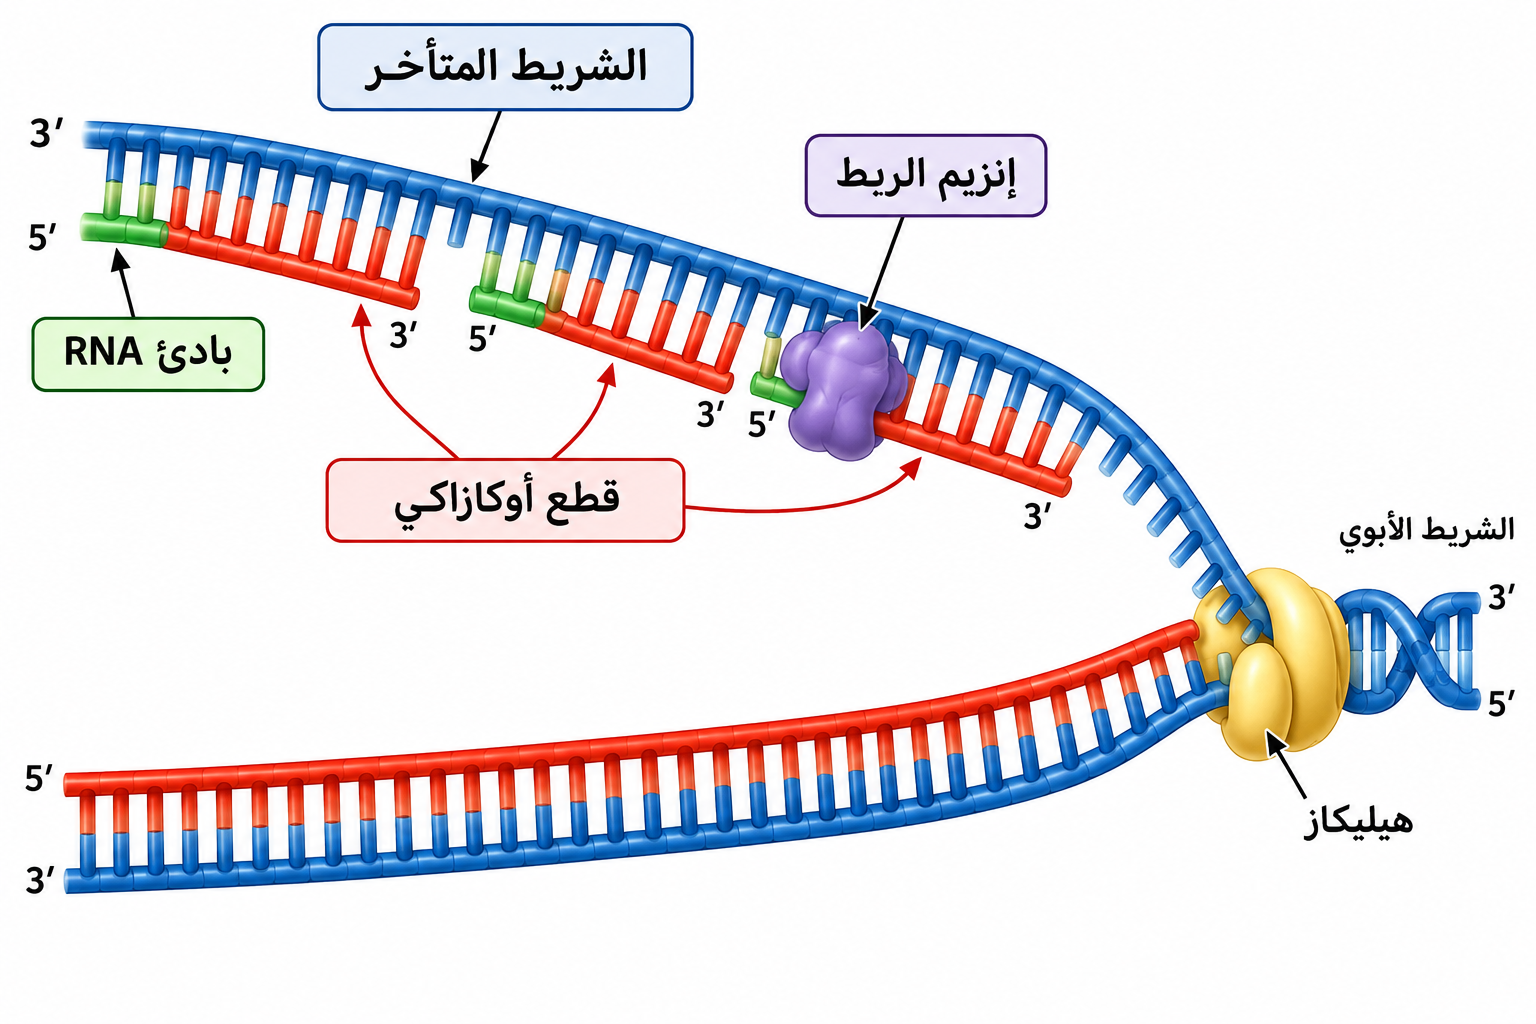
  • تتحرك إنزيمات اللولب (DNA Helicase) على امتداد اللولب المزدوج وتفصل الشريطين.
  • تعمل بـ كسر الروابط الهيدروجينية بين القواعد المتزاوجة.
  • ينتج عن ذلك شوكة التضاعف (Replication Fork) حيث تكوّن القواعد الحرة روابط مع نيوكليوتيدات جديدة.
إنزيم الهيليكاز
إنزيم الهيليكاز
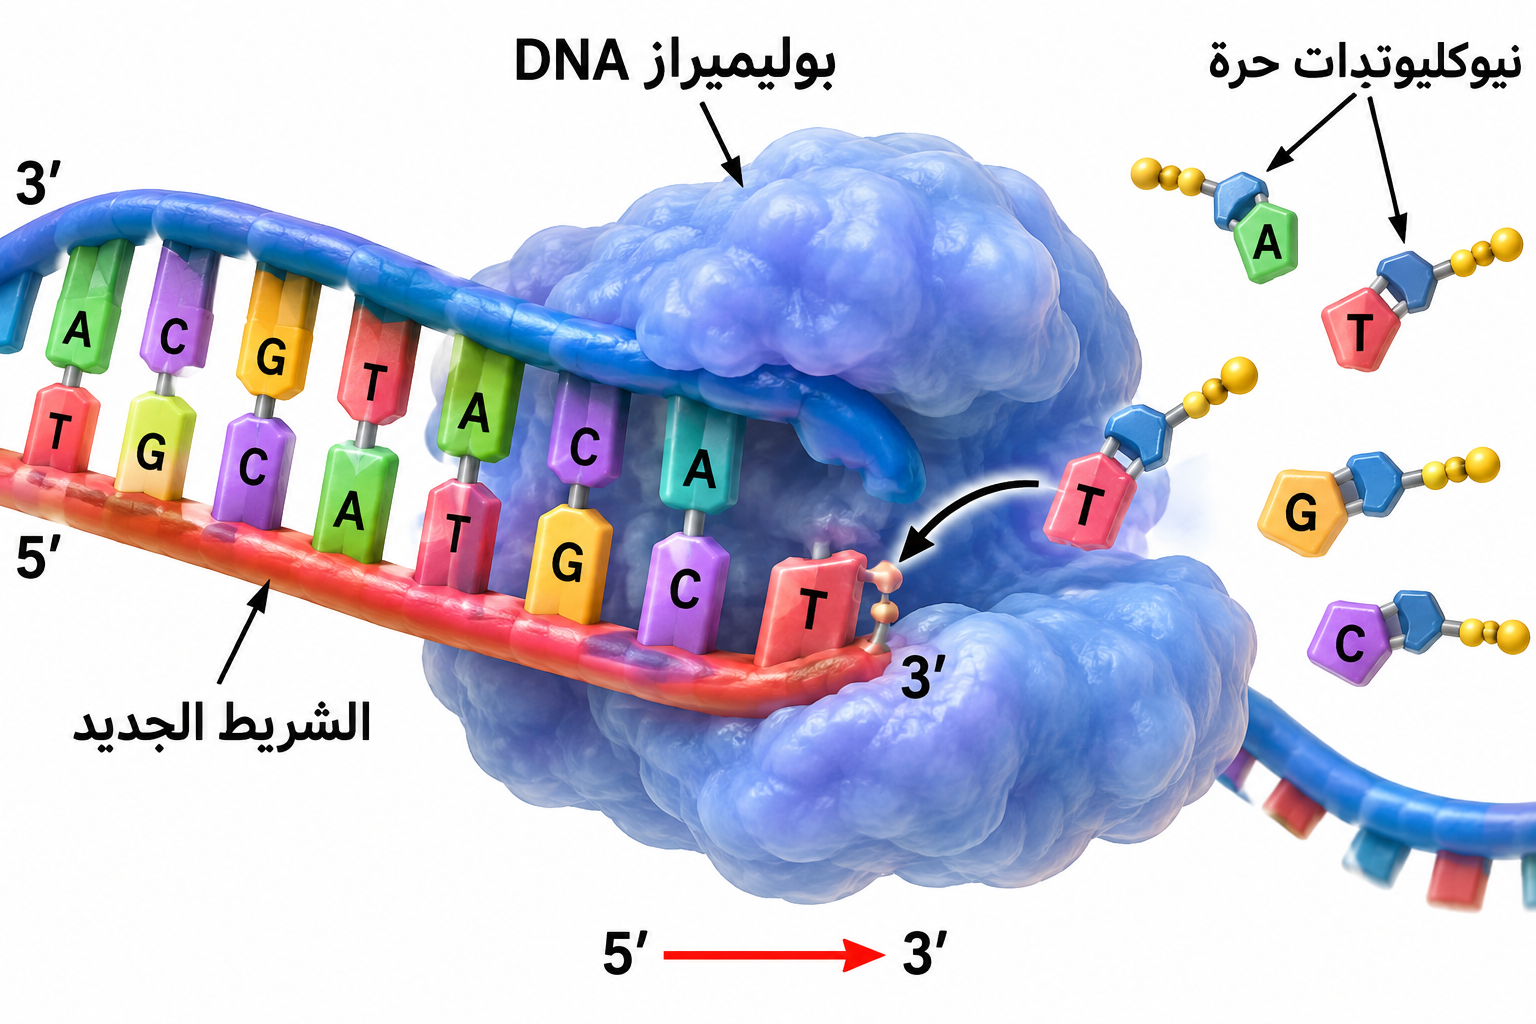
إنزيم DNA بوليميراز
إنزيم DNA بوليميراز
وجه المقارنةإنزيم الهيليكازإنزيم DNA بوليميراز
الشكليبيّن الشكل دور إنزيم الهيليكاز في بداية تضاعف DNAيوضح الشكل دور إنزيم DNA بوليميراز في بناء الشريط الجديد
الشريطينإذ يفك التفاف اللولب المزدوج ويكسر الروابط الهيدروجينية بين القواعد المتزاوجة ليفصل الشريطينإذ يضيف النيوكليوتيدات إلى الطرف 3′ للشريط النامي اعتمادًا على تتابع الشريط القالب
يستطيع—لا يستطيع إنزيم DNA بوليميريز أن يبدأ وحده البناء على الشريط الجديد
يضيف—يضيف إنزيم البوليميريز النيوكليوتيدات بعدها
الشريطين—بعد نسخ الشريطين تُزال البوادئ بواسطة نوع من إنزيم البوليميريز
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 10 / 19
عاشرًا: الشريط القائد والشريط المتأخر

عاشرًا: الشريط القائد والشريط المتأخر

الشريط القالب ‎3′ → 5′‎

  • لا توجد مشكلة هنا، لأن إنزيم البلمرة يتبع إنزيم اللولب مباشرة.
  • يضيف نيوكليوتيدات إلى الطرف 3′ للشريط الجديد فيتكون شريط متصل.
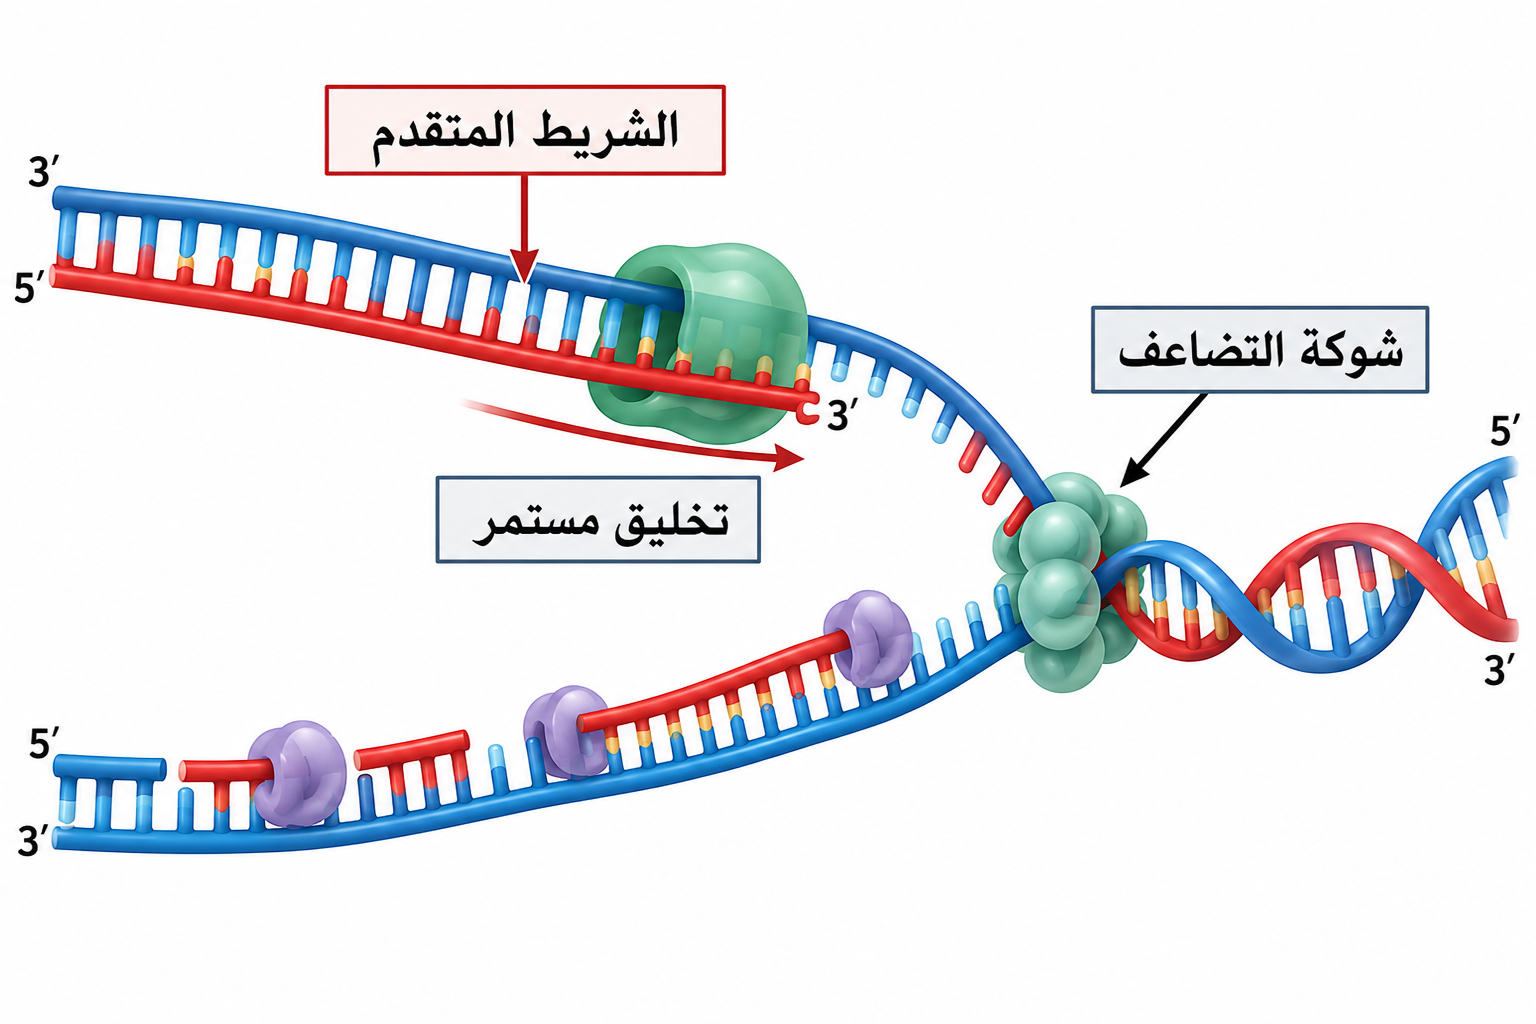
  • يُسمّى هذا الشريط الشريط القائد (المتقدم) Leading strand.
الشريط المتقدم
الشريط المتقدم

الشريط القالب ‎5′ → 3′‎

  • لا يستطيع إنزيم البلمرة العمل في الاتجاه المعاكس على الشريط الجديد.
  • لذلك يُبنى هذا الشريط على هيئة قطع صغيرة تُسمّى قطع أوكازاكي (Okazaki Fragments).
  • تُرتبط هذه القطع بعضها ببعض بواسطة إنزيم الربط (DNA Ligase).
  • يُسمّى الشريط الناتج الشريط المتأخر (Lagging strand).
وجه المقارنة الشريط القائد الشريط المتأخر
القالب ‎3′ → 5′‎ ‎5′ → 3′‎
طريقة البناء متصل في اتجاه واحد قطع صغيرة (أوكازاكي)
الحاجة إلى إنزيم الربط لا يحتاج يحتاج لربط القطع
اتجاه حركة البلمرة بالنسبة للشوكة في اتجاه فتح الشوكة بعيدًا عن الشوكة
شكل 13: الشريط المتأخر وقطع أوكازاكي يبين الشكل الشريط المتأخر الذي يُبنى على هيئة قطع صغيرة تسمى قطع أوكازاكي، لأن إنزيم البلمرة يعمل في عكس اتجاه فتح شوكة التضاعف على هذا الشريط. ولذلك يحتاج هذا الشريط إلى إنزيم الربط لوصل القطع المتتابعة بعد بنائها، وهو ما يميزه عن الشريط المتقدم المتصل.
شكل 13←الشريط المتأخر وقطع أوكازاكي يبين الشكل الشريط المتأخر الذي يُبنى على هيئة قطع صغيرة تسمى قطع أوكازاكي، لأن إنزيم البلمرة يعمل في عكس اتجاه فتح شوكة التضاعف على هذا الشريط. ولذلك يحتاج هذا الشريط إلى إنزيم الربط لوصل القطع المتتابعة بعد بنائها، وهو ما يميزه عن الشريط المتقدم المتصل.: عاشرًا: الشريط القائد والشريط المتأخر
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 11 / 19
حادي عشر: البرايميز والبادئ ودور الإنزيمات

حادي عشر: البرايميز والبادئ ودور الإنزيمات

حاجة البلمرة إلى بادئ

  • لا يستطيع إنزيم DNA بوليميريز أن يبدأ وحده البناء على الشريط الجديد.
  • يحتاج إلى إنزيم البرايميز (Primase).
  • يصنع البرايميز تتابعات قصيرة من RNA تُسمّى البوادئ (Primers) وترتبط بالشريط القالب.
  • يضيف إنزيم البوليميريز النيوكليوتيدات بعدها.
  • بعد نسخ الشريطين تُزال البوادئ بواسطة نوع من إنزيم البوليميريز.
  • تُضاف نيوكليوتيدات DNA مكانها، ثم تُربط القطع.
الإنزيم وظيفته
إنزيم اللولب (Helicase) يفصل الشريطين بكسر الروابط الهيدروجينية
البرايميز (Primase) يصنع بوادئ RNA قصيرة تبدأ بها البلمرة
DNA بوليميريز يضيف النيوكليوتيدات إلى الطرف 3′ ويتحقق من تزاوج القواعد
إنزيم الربط (Ligase) يربط قطع أوكازاكي بعضها ببعض
  • يتكوّن جزيئان من DNA، يحتوي كل منهما على شريط قديم وشريط جديد.
  • لذلك يُسمّى التضاعف شبه محافظ، وتتطابق المعلومات الوراثية في الخليتين الجديدتين.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 12 / 19
ثاني عشر: نقاط بدء التضاعف في الخلايا المختلفة

ثاني عشر: نقاط بدء التضاعف في الخلايا المختلفة

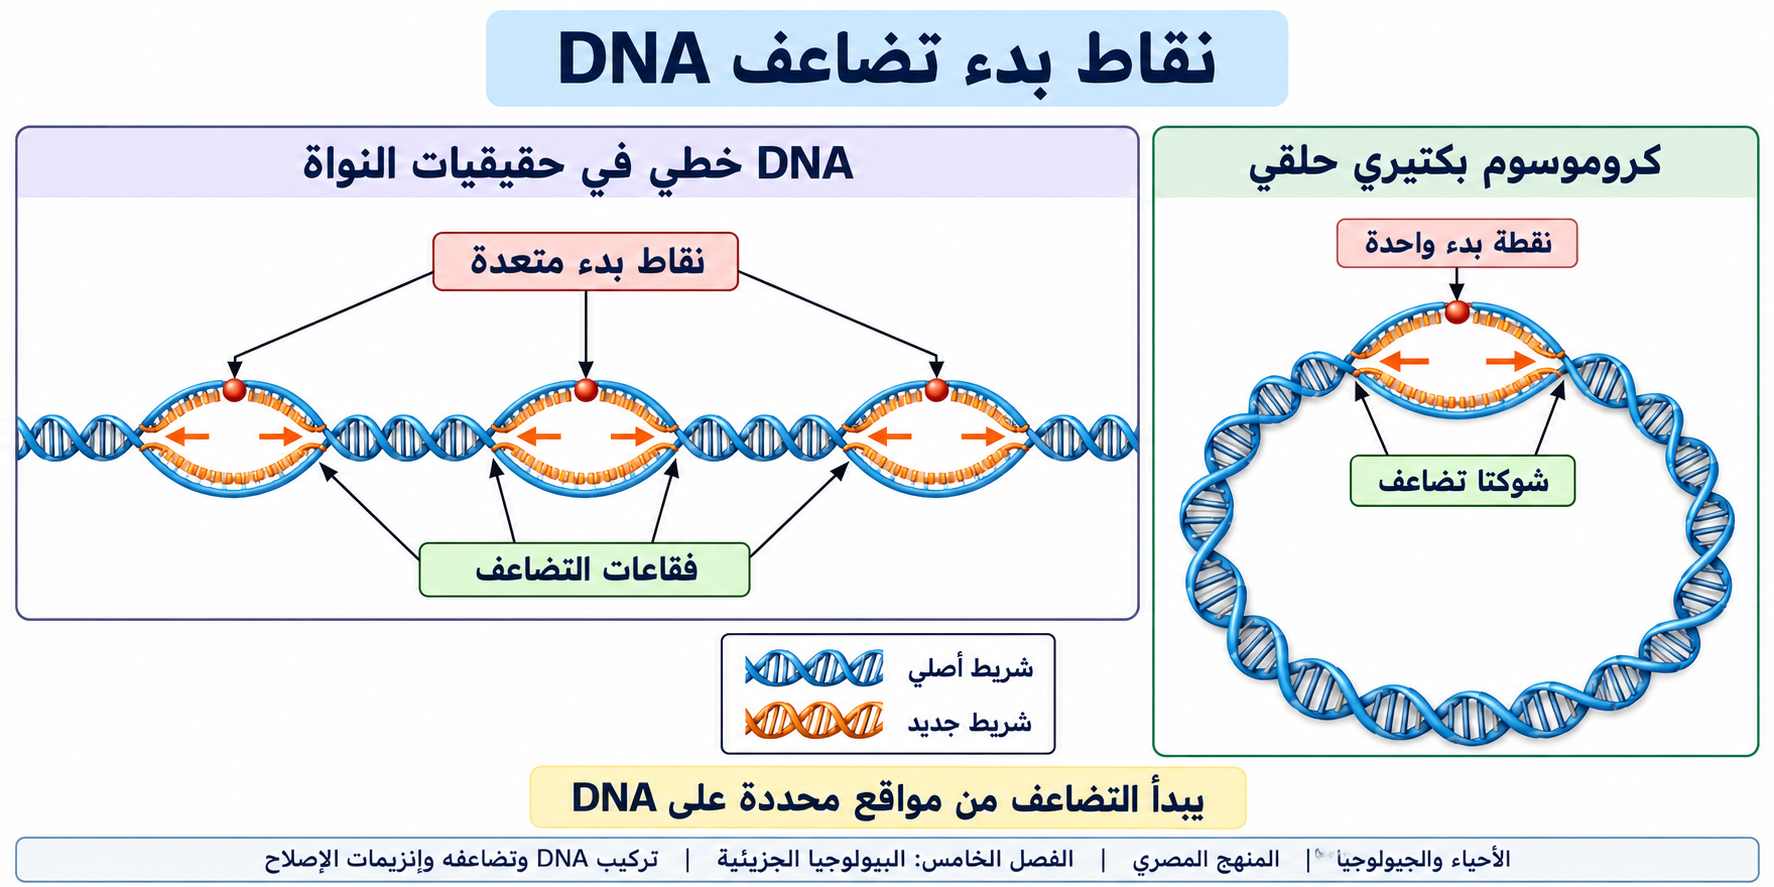
شكل 15: نقاط بدء تضاعف DNA
  • في حقيقيات النواة ينتظم DNA في صورة صبغيات، ويحتوي كل صبغي على جزيء DNA واحد يمتد من طرف إلى آخر.
  • يبدأ النسخ عند مئات أو آلاف النقاط على امتداد الجزيء، فيتم التضاعف بسرعة.
  • في أوليات النواة يوجد DNA على هيئة لولب مزدوج تلتحم نهايتاه (حلقي).
  • يتصل هذا الجزيء بـ الغشاء البلازمي عند نقطة واحدة يبدأ منها النسخ.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 13 / 19
ثالث عشر: إصلاح عيوب DNA

ثالث عشر: إصلاح عيوب DNA

لماذا يتلف DNA؟

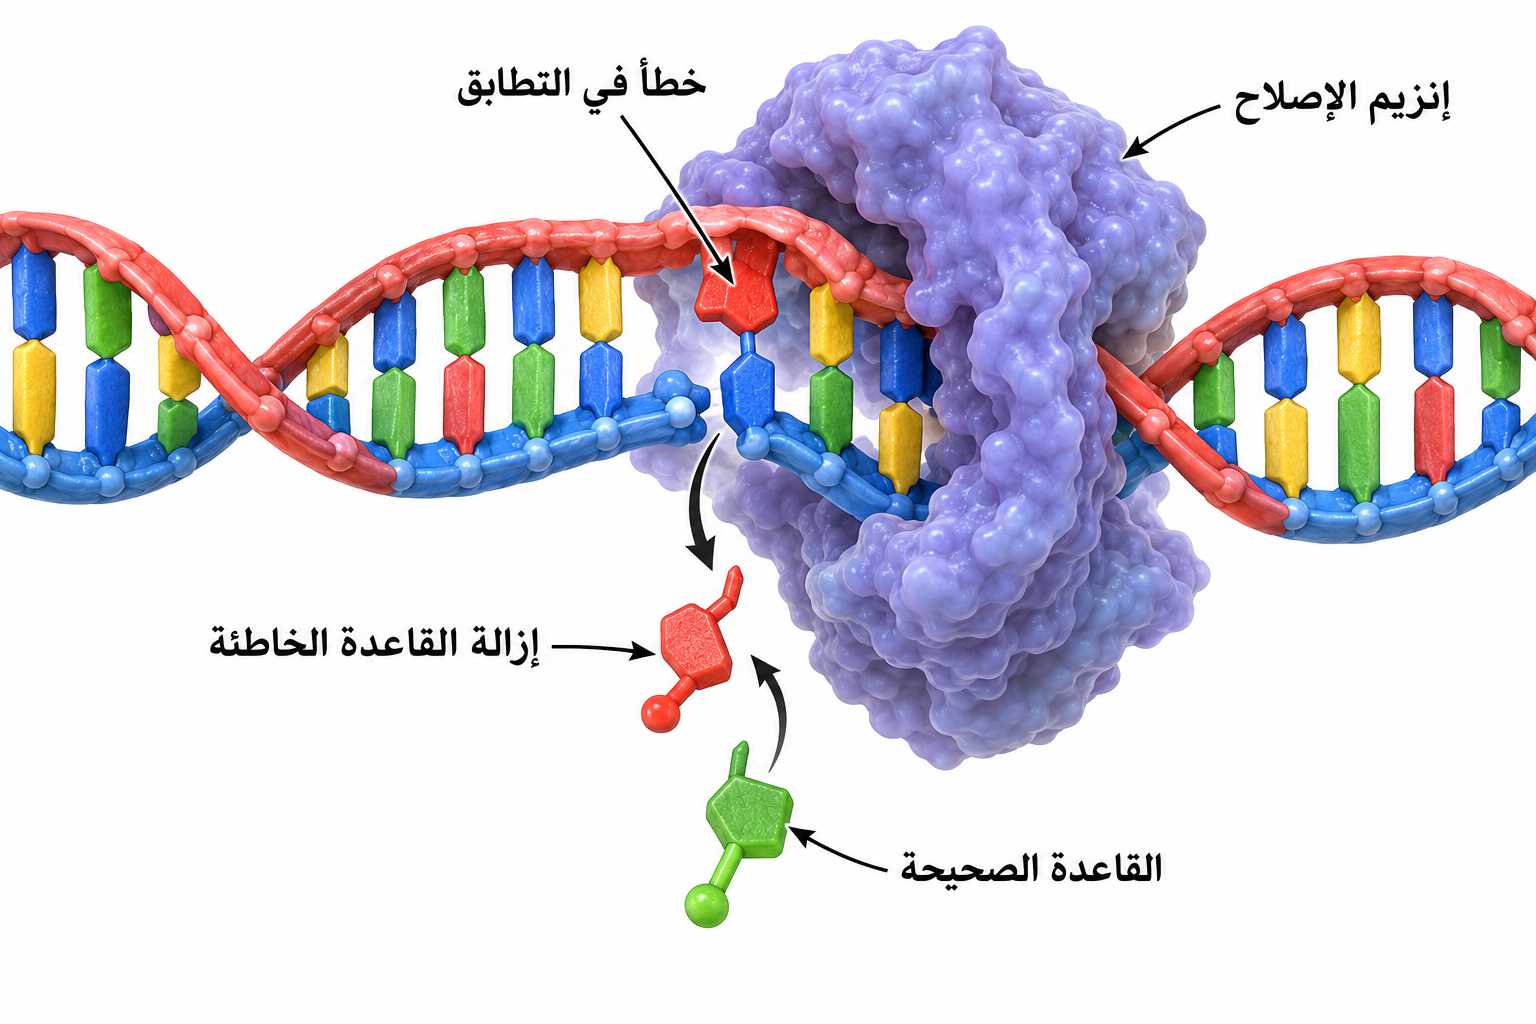
شكل 14: إصلاح أخطاء DNA يوضح الشكل أن جزيء DNA معرّض للتلف بسبب الحرارة والإشعاع والمواد الكيميائية، إذ تُفقد يوميًا نحو 5000 قاعدة بيورينية من DNA الخلية البشرية. ومع ذلك تملك الخلية أنظمة إصلاح دقيقة تعيد تصحيح معظم هذه التلفيات، لأن أي تغيير غير مُصلح قد يغيّر البروتينات التي تُبنى وفق المعلومات الوراثية.
  • المركبات البيولوجية التي توجد على شكل بوليمرات (النشا والبروتين والأحماض النووية) معرّضة للتلف من حرارة الجسم والبيئة المائية داخل الخلية.
  • يُقدَّر أن نحو 5000 قاعدة بيورينية (أدينين وجوانين) تُفقد يوميًا من DNA الخلية البشرية.
  • السبب أن الحرارة تكسر الروابط التساهمية التي تربط السكريات الخماسية.
  • يتلف DNA أيضًا بالعديد من المركبات الكيميائية وبـ الإشعاع.
  • أي تلف قد يغيّر المعلومات المحمولة عليه، فتنتج تغيرات خطيرة في بروتينات الخلية.

كفاءة الإصلاح

  • رغم آلاف التغيرات اليومية، لا يستمر في DNA الخلية كل عام سوى تغيران أو ثلاثة دائمة.
  • معظم التغيرات تُزال بكفاءة نتيجة نشاط مجموعة من نحو 20 إنزيمًا تُصلح عيوب DNA.
  • تعمل هذه الإنزيمات (ومنها إنزيمات الربط) في تناغم لتتعرف على المنطقة التالفة وتصلحها.

خطوات الإصلاح

  • تتعرف الإنزيمات على الجزء التالف من الجزيء.
  • تُزال المنطقة التالفة.
  • تُستبدل بها نيوكليوتيدات تتزاوج مع النيوكليوتيدات الموجودة على الشريط المقابل.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 14 / 19
رابع عشر: شروط الإصلاح وأهمية اللولب المزدوج

رابع عشر: شروط الإصلاح وأهمية اللولب المزدوج

الاعتماد على نسختين

  • يعتمد الإصلاح على وجود نسختين من المعلومات الوراثية، واحدة على كل شريط.
  • طالما بقي أحد الشريطين سليمًا، تستخدمه الإنزيمات قالبًا لإصلاح التلف في الشريط المقابل.
  • كل تلف يمكن إصلاحه إلا إذا حدث في الشريطين معًا وفي الموقع نفسه وفي الوقت ذاته.
  • يؤدي ذلك إلى غياب القالب السليم فيحدث تغير دائم في التتابع، أي طفرة.
  • المادة الوراثية لبعض الفيروسات شريط مفرد من RNA.
  • ليس لهذه المادة شريط مقابل يُستخدم قالبًا، فيحدث فيها معدل مرتفع من التغير الوراثي.
اللولب المزدوج←حيوي للثبات الوراثي للكائنات الحية التي يوجد بها.
  • التلف يحدث يوميًا بآلاف المرات.
  • نحو 20 إنزيمًا تعمل على الإصلاح.
  • الشريط المقابل السليم هو القالب.
  • تلف الشريطين في الموقع والوقت نفسيهما ينتج عنه طفرة.
  • .egp-ex{margin:18px 0;border:1px solid rgba(79,63,224,.2);border-radius:16px;overflow:hidden;background:#fff}.egp-ex-h{padding:10px 16px;font-weight:800;background:linear-gradient(90deg,#4f3fe0,#22c1c3);color:#fff}.egp-ex-tabs{display:flex;flex-wrap:wrap;gap:6px;padding:10px 12px;background:#f7f6ff}.egp-ex-b{border:1px solid rgba(79,63,224,.3);background:#fff;border-radius:20px;padding:5px 14px;font-weight:700;cursor:pointer}.egp-ex-b.on{background:#4f3fe0;color:#fff}.egp-ex-p{padding:12px 16px}function egpEx(b,k){var w=b.closest(‘.egp-ex’);w.querySelectorAll(‘.egp-ex-b’).forEach(function(x,i){x.classList.toggle(‘on’,i===k)});w.querySelectorAll(‘.egp-ex-p’).forEach(function(x,i){x.hidden=i!==k})}
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 15 / 19
الشرح الموسوعي المعتمد والمصطلحات الكاملة (كتب الوزارة + الامتحان + المعاصر + الوسام)

الشرح الموسوعي المعتمد والمصطلحات الكاملة (كتب الوزارة + الامتحان + المعاصر + الوسام)

  • 📖
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 16 / 19
📌 قاموس المصطلحات والمفاهيم العلمية الدقيقة:

📌 قاموس المصطلحات والمفاهيم العلمية الدقيقة:

  • النيوكليوتيدة:
  • الوحدة البنائية لجزيء DNA، وتتألف من سكر خماسي الكربون دي أوكسي ريبوز، وقاعدة نيتروجينية ترتبط بذرة الكربون 1′ برابطة تساهمية، ومجموعة فوسفات ترتبط بذرة الكربون 5′ برابطة إسترية تساهمية.
  • قواعد شارجاف (Chargaff’s Rules):
  • قانون التكافؤ البيوكيميائي في DNA المزدوج، والذي ينص على أن نسبة الأدينين تساوي الثايمين (A = T)، ونسبة الجوانين تساوي السيتوزين (G = C)؛ وبالتالي فإن مجموع البيورينات يساوي مجموع البيريميدينات.
  • إنزيمات الربط (DNA Ligases):
  • إنزيمات مسؤولة عن تكوين روابط تساهمية فوسفاتية ثنائية الإستر لربط قطع أوكازاكي في الشريط المتأخر أثناء التضاعف، وإصلاح العيوب والكسور في هيكل السكر والفوسفات الناتجة عن الحرارة والإشعاع.
  • الشفرة الوراثية (Genetic Code):
  • تتابع النيوكليوتيدات في صورة ثلاثيات (كودونات) على جزيء mRNA، يمثل كل كودون منها شفرة حمض أميني معين في سلسلة عديد الببتيد أو إشارة لبدء أو وقف التخليق.
  • كودون البدء وكودونات الوقف:
  • كودون البدء هو دائماً AUG (يشفر الحمض الأميني ميثيونين)؛ وكودونات الوقف ثلاثة لا تشفر أي أحماض أمينية وهي (UAA, UAG, UGA) وتنهي عملية الترجمة بارتباط عامل الإطلاق.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 17 / 19
⚖️ القوانين والعلاقات الرياضية والفيزيائية الحاكمة:

⚖️ القوانين والعلاقات الرياضية والفيزيائية الحاكمة:

وجه المقارنةالفكرة الأساسيةكلمات مفتاحية
قانون حسابات النيوكليوتيدات في جزيء DNA المزدوج
  • [ الصيغة: A% + G% = T% + C% = 50%
  • عدد الروابط الهيدروجينية = (2 × A) + (3 × G) ] يرتبط الأدينين بالثايمين برابطتين هيدروجينيتين
  • والجوانين بالسيتوزين بثلاث روابط هيدروجينية
  • ولذلك فإن عينات DNA الغنية بـ G-C تحتاج طاقة حرارية أعلى لفصل شريطيها
الصيغةالروابطالهيدروجينيةيرتبط
قانون حساب اللفات في جزيء DNA[ الصيغة: عدد اللفات = (عدد أزواج القواعد) / 10 = (إجمالي نيوكليوتيدات الشريطين) / 20 ] تحتوي اللفة الواحدة الكاملة في اللولب المزدوج على 10 أزواج من النيوكليوتيدات (أي 20 نيوكليوتيدة على الشريطين معاً)الصيغةأزواجالقواعدإجمالي
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 18 / 19
🔍 الشرح والتحليل المستفيض وتفسيرات علل والاستنتاجات:

🔍 الشرح والتحليل المستفيض وتفسيرات علل والاستنتاجات:

★ كتاب الشرح والتفصيل العلمي الشامل المعتمد ★

  • كتاب الشرح المفصل التركيب الجزيئي للحمض النووي DNA وتضاعفه والشفرة الوراثية وتخليق البروتين
  • الأحياء والجيولوجيا | الصف الثالث الثانوي (الثانوية العامة) | العام الدراسي المعتمد 2026 / 2027 | الفصل الخامس: البيولوجيا الجزيئية و DNA
  • 🎯 أهداف التعلم والمخرجات التعليمية المقررة بالتفصيل:
  • • استعراض التجارب التاريخية لإثبات أن DNA هو المادة الوراثية (جريفيث، أفيري، هيرشي وتشيس).
  • • دراسة التركيب الكيميائي والفراغي للولب المزدوج لنموذج واطسون وكريك وحسابات قواعد شارجاف.
  • • تتبع الإنزيمات المسؤولة عن تضاعف DNA إنزيم اللولب، بلمرة DNA، وإنزيم الربط، وقطع أوكازاكي.
  • يوضح الشكل نقاط بدء تضاعف DNA، وهي مواقع محددة على الجزيء يبدأ عندها فتح اللولب وتكوين شوكتي تضاعف تتحركان في اتجاهين متعاكسين.
  • وبذلك يُضاعف الجزيء الطويل بسرعة، إذ تتكون عدة نقاط بدء على الكروموسوم الواحد.
  • • شرح آلية إصلاح عيوب DNA بواسطة إنزيمات الربط الوراثية ومخاطر الطفرات.
  • • توضيح مراحل التعبير الجيني نسخ الحمض النووي الريبوزي mRNA، وترجمته إلى سلاسل عديد ببتيد بالريبوسومات.
  • ◄ 1. الأدلة التاريخية القاطعة على أن DNA هو المادة الوراثية
  • تاريخ إثبات الطبيعة الوراثية للـ DNA يمثل ملحمة تجريبية كبرى خاضها علماء الأحياء والبيوكيمياء:
  • أ.
  • تجارب فريدريك جريفيث (1928) عمل على بكتيريا الالتهاب الرئوي (Streptococcus pneumoniae) بسلالتيها: سلالة ملساء (S) مميتة محاطة بمحفظة تقتل الفئران، وسلالة خشنة (R) غير مميتة تصيب الفئران بالالتهاب ولكنها تشفى.
  • عند حقن فئران بخليط من بكتيريا S ميتة حرارياً وبكتيريا R حية، ماتت الفئران، وعزل من دمائها بكتيريا S حية متكاثرة!
  • استنتج جريفيث حدوث ظاهرة (التحول البكتيري Bacterial Transformation) حيث انتقلت مادة وراثية من السلالة الميتة S إلى السلالة الحية R وحولتها لـ S مميتة.
  • ب.
  • تجارب أفيري ومعاونوه (1944) قاموا بعزل المادة النشطة المسؤولة عن التحول البكتيري وتحليلها كيميائياً وأكدوا أنها تتكون من حمض نووي DNA.
  • وحسم الجدل بالتحليل الحاسم باستخدام إنزيم دي أوكسي ريبونيوكليز (Deoxyribonuclease) الذي يحلل DNA تحليلاً كاملاً ولا يؤثر على البروتينات؛ فعند معاملة مادة التحول به توقف التحول البكتيري تماماً، مما أثبت بشكل قاطع أن DNA هو المادة الوراثية وليس البروتين.
  • ج.
  • تجربة هيرشي وتشيس (1952) باستخدام الفاج (T2 Bacteriophage) قاما بترقيم بروتين الفاج بالكبريت المشع (35S) وحمض الفاج النووي بالفوسفور المشع (32P).
  • بعد إصابة البكتيريا، وجد أن أقل من 3% فقط من الكبريت دخل الخلية، بينما دخل ما يقرب من 100% من الفوسفور المشع وانتقلت صفات الفاج للأجيال اللاحقة، مما أكد نهائياً أن DNA هو جزيء الوراثة.
  • شكل توضيحي (شكل 1 – اللولب المزدوج لـ DNA وشوكة التضاعف) المخطط الفراغي لتضاعف شريطي DNA بواسطة اللولب والبلمرة وإنزيمات الربط
  • ◄ 2. التركيب الجزيئي للولب المزدوج وميكانيكا التضاعف نصف المحافظ
  • نموذج واطسون وكريك (1953) استند إلى صور فرانكلين لحيود الأشعة السينية، وأوضح أن DNA يتكون من شريطين متوازيين في اتجاهين متعاكسين (أحدهما 5′ إلى 3′ والآخر 3′ إلى 5′).
  • هذا التعاكس ضروري فراغياً لتتكون الروابط الهيدروجينية بين القواعد النيتروجينية المتكاملة بشكل سليم (A يرتبط مع T برابطتين، وG يرتبط مع C بثلاث روابط).
  • هيكل سكر وفوسفات يمثل الحافتين الخارجيتين، والقواعد تبرز للداخل عمودياً على المحور.
  • قطر اللولب ثابت (2 نانومتر) لأن كل زوج يتكون من قاعدة بيورينية ثنائية الحلقة وقاعدة بيريميدينية أحادية الحلقة.وكل لفة كاملة تحتوي على 10 أزواج من النيوكليوتيدات بطول 3.4 نانومتر.
  • ميكانيكا التضاعف يحدث التضاعف في طور البناء (S) قبل الانقسام الخلوي وفق النمط نصف المحافظ (Semiconservative): (1) إنزيم اللولب (Helicase) يكسر الروابط الهيدروجينية ويفصل الشريطين مشكلاً شوكة التضاعف؛ (2) إنزيم بلمرة DNA يقرأ شريط القالب في اتجاه 3′ إلى 5′ ويبني الشريط الجديد دائماً في اتجاه 5′ إلى 3’؛ (3) الشريط القائد يبنى متصلاً في اتجاه شوكة التضاعف؛ (4) الشريط المتأخر يبنى في الاتجاه المعاكس على هيئة قطع صغيرة غير متصلة تسمى (قطع أوكازاكي Okazaki Fragments)؛ (5) يتدخل إنزيم الربط (DNA Ligase) لتوصيل هذه القطع بروابط تساهمية ليكتمل بناء الشريطين المتطابقين.
شكل توضيحي (شكل 2 – مراحل تخليق البروتين ونسخ وترجمة mRNA)←الرسم التخطيطي لمواقع الريبوسوم (P و A) وجزيئات tRNA وحركة استطالة سلسلة الببتيد

◄ 3. الشفرة الوراثية وتخليق البروتين في الخلية

  1. تخليق البروتين هو التجسيد الحي للمعلومة الوراثية
  2. ويتم عبر مرحلتين رئيسيتين:
  • أ.
  • عملية النسخ (Transcription) يقوم إنزيم بلمرة RNA بالارتباط بتتابع محدد على شريط DNA يسمى (المحفز Promoter)، ثم يفصل الشريطين ويبدأ بنسخ شريط mRNA في اتجاه 5′ إلى 3′ وفق تكامل القواعد مع استبدال الثايمين باليوراسيل (U).
  • يضاف إلى الطرف 5′ كاب من جوانين لحمايته، وإلى الطرف 3′ ذيل من عديد الأدينين (حوالي 200 نيوكليوتيدة أدينين) لحماية mRNA من التحلل بالإنزيمات في السيتوبلازم.
  • ب.
  • عملية الترجمة (Translation) يخرج mRNA إلى السيتوبلازم ويرتبط بتحت وحدة الريبوسوم الصغيرة لتبدأ الترجمة: (1) البدء: يرتبط tRNA الحامل للميثيونين بكودون البدء AUG؛ ثم تنضم تحت وحدة الريبوسوم الكبيرة ذات الموقعين (P الببتيديل و A الأمينوأسيل)؛ (2) الاستطالة: يدخل tRNA ثانٍ يحمل الحمض الأميني التالي إلى الموقع A، وتتكون رابطة ببتيدية بين الحمضين بتفاعل نقل الببتيديل بفضل إنزيم ريبوسومي، ثم يتحرك الريبوسوم بمقدار كودون واحد؛ (3) الإنهاء: يستمر بناء السلسلة حتى يصل الريبوسوم إلى أحد كودونات الوقف (UAA, UAG, UGA)، فيرتبط به بروتين (عامل الإطلاق Release Factor) الذي يفصل سلسلة عديد الببتيد ويحرر الريبوسوم وmRNA.
  • شكل توضيحي (جدول 1 – الشفرة الوراثية وتطبيقات الهندسة الوراثية): جدول الشفرة الوراثية العالمية وتطبيقات إنزيمات القصر وتكنولوجيا البلازميدات
  • 🧮 التطبيقات والمسائل النموذجية المحلولة بالخطوات (Step-by-Step Worked Examples):
  • مثال نموذجي 1 مسألة بيولوجيا جزيئية شاملة: حسابات القواعد والروابط والشفرات
وجه المقارنةالفكرة الأساسيةكلمات مفتاحية
نص المسألة / السؤال
  • قطعة من جزيء DNA مزدوج تتكون من 600 زوج من النيوكليوتيدات
  • فإذا كان عدد قواعد الجوانين (G) فيها = 240 قاعدة
قطعةجزيءمزدوجتتكون
احسب بدقة
  • (1) عدد قواعد السيتوزين والأدينين والثايمين
  • (2) النسبة المئوية لقواعد الأدينين
  • (3) إجمالي عدد الروابط الهيدروجينية في هذه القطعة
  • (4) عدد اللفات الكاملة في هذا الجزيء
  • (5) أقصى عدد من الأحماض الأمينية التي يمكن أن تنتج إذا نسخت هذه القطعة وترجمت بالكامل
قواعدالسيتوزينوالأدينينوالثايمين
  • خطوات الحل والشرح النموذجي الخطوة 1: إجمالي عدد النيوكليوتيدات = 600 زوج × 2 = 1,200 نيوكليوتيدة.
  • شارجاف ينص على أن G = C؛ إذن C = 240 قاعدة.
  • مجموع G + C = 240 + 240 = 480 قاعدة.
  • إذن A + T = 1,200 – 480 = 720 قاعدة.
  • وبما أن A = T، فإن A = 360 قاعدة، و T = 360 قاعدة.
  • الخطوة 2 النسبة المئوية للأدينين = (360 / 1,200) × 100% = 30%.
  • الخطوة 3 عدد الروابط الهيدروجينية = (A × 2) + (G × 3) = (360 × 2) + (240 × 3) = 720 + 720 = 1,440 رابطة هيدروجينية.
  • الخطوة 4 عدد اللفات الكاملة = عدد الأزواج / 10 = 600 / 10 = 60 لفة كاملة.
  • الخطوة 5 ينسخ mRNA من شريط واحد فقط (طوله 600 نيوكليوتيدة).
  • كل حمض أميني يحتاج كودون ثلاثي (3 نيوكليوتيدات)، مع استبعاد كودون الوقف الذي لا يشفر أحماضاً.
  • إذن عدد الكودونات الكلي = 600 / 3 = 200 كودون.
  • عدد الأحماض الأمينية الناتجة = 200 – 1 (كودون الوقف) = 199 حمضاً أمينياً في سلسلة عديد الببتيد.
مثال نموذجي 2←مسألة تتابع القواعد ومضادات الكودونات
وجه المقارنةالفكرة الأساسيةكلمات مفتاحية
نص المسألة / السؤالإذا كان تتابع القواعد على شريط DNA القالب هو: 3′- TAC GGA CTT CTC ATT -5′تتابعالقواعدشريطالقالب
استنتج
  • (1) تتابع النيوكليوتيدات على شريط mRNA المنسوخ مع تحديد الأطراف
  • (2) تتابعات مضادات الكودونات على جزيئات tRNA المناسبة
  • (3) عدد الأحماض الأمينية الناتجة عند الترجمة
تتابعالنيوكليوتيداتشريطmRNA
وجه المقارنةالفكرة الأساسيةكلمات مفتاحية
خطوات الحل والشرح النموذجي
  • الخطوة 1: ننسخ mRNA بتكامل القواعد (A أمام T
  • و U أمام A
  • و C أمام G
  • و G أمام C) من الطرف 5′ إلى 3′: mRNA = 5′- AUG CCU GAA GAG UAA -3′
الخطوةننسخmRNAبتكامل
الخطوة 2
  • مضادات الكودونات على tRNA (من 3′ إلى 5′ لتتكامل مع كودونات mRNA): الكودون 1 (AUG) مضاده 3′-UAC-5′ (يحمل ميثيونين)
  • الكودون 2 (CCU) مضاده 3′-GGA-5’
  • الكودون 3 (GAA) مضاده 3′-CUU-5’
  • الكودون 4 (GAG) مضاده 3′-CUC-5’
  • الكودون الأخير (UAA) هو كودون وقف يرتبط بعامل الإطلاق وليس له tRNA مضاد
مضاداتالكودوناتtRNAلتتكامل
الخطوة 3عدد الأحماض الأمينية = 4 أحماض أمينيةالأحماضالأمينيةأحماضأمينية
•💡 أسرار وتكات التفوق وملاحظات خبير المادة (Expert Notes & Exam Secrets)أسراروتكاتالتفوقوملاحظات
★ قاعدة ذهبية
  • إنزيم بلمرة DNA يبني دائماً في اتجاه 5′ إلى 3′ فقط
  • ولذلك يستطيع بناء الشريط القائد متصلاً
  • بينما يبني الشريط المعاكس على شكل قطع أوكازاكي تحتاج لإنزيم الربط
إنزيمبلمرةيبنيدائما
  • ★ الذيل عديد الأدينين (Poly-A Tail) على mRNA لا يمثل شفرة وراثية ولا يترجم لأحماض أمينية، بل وظيفته حيوية بحتة لحماية جزيء mRNA من التحلل بفعل إنزيمات السيتوبلازم.
  • ★ كودونات الوقف الثلاثة (UAA, UAG, UGA) لا توجد لها جزيئات tRNA مضادة للكودون في الخلية؛ وإنما يرتبط بها بروتين يسمى ‘عامل الإطلاق’ يحرر السلسلة ويفكك الريبوسوم.
  • 🌍 التطبيقات الحياتية والصناعية والتكنولوجية (Real-World Applications):
  • ✔ البصمة الوراثية في الطب الشرعي (DNA Fingerprinting) تحليل التكرارات المترادفة القصيرة (STRs) بمطابقة العينات البيولوجية بمسرح الجريمة بنسبة دقة تفوق 99.999%.
  • ✔ تفاعل البلمرة المتسلسل (PCR) تضخيم ملايين النسخ من جينات معينة في ساعات قليلة باستخدام جهاز الثيرموسايكلير وإنزيم تاك بوليميريز المقاوم للحرارة من البكتيريا الحارة.
✔ علاج الأمراض الجينية بتقنية كريسبر (CRISPR-Cas9)←تقنية المقص الجيني الدقيق لقص وتعديل الطفرات المسببة لأمراض أنيميا الخلايا المنجلية وضمور العضلات.
الدرس الثاني: تركيب DNA وتضاعفه وإنزيمات الإصلاح · 19 / 19